
Nghiên cứu tác động của cao chiết lá vối (Cleistocalyx opercculatus) lên một số vi khuẩn gây nhiễm trùng thường gặp
LỜI MỞ ĐẦU
Kháng kháng sinh là khả năng của các vi sinh vật như vi khuẩn, nấm hoặc ký sinh trùng sinh trưởng với sự hiện diện của một loại thuốc mà thông thường có thể giết chết hoặc hạn chế sự phát triển của chúng. Kết quả là các liệu pháp điều trị thông thường trở nên không hiệu quả. Nhiễm trùng do đó trở nên nghiêm trọng hơn, dẫn đến thời gian bị bệnh lâu hơn, chi phí điều trị cao hơn và nguy cơ tử vong cao hơn. Bởi vì kháng kháng sinh, nên ngày càng có nhiều các bệnh nhiễm trùng thông thường như viêm phổi, nhiễm trùng đường tiết niệu, bệnh lao và các bênh do thực phẩm gây nên càng trở nên khó điều trị hơn và đôi khi không thể điều trị được. Kháng kháng sinh là mối đe dọa sức khỏe cộng động trên toàn thế giới, ảnh hưởng đến sức khỏe và cuốc sống của người dân và sự phát triển tổng thể, bền vững của cả một quốc gia. Việt Nam là một trong những các quốc gia, trong những năm gần đây đã phải chứng kiến mối đe dọa ngày càng gia tăng của kháng kháng sinh, do việc sử dụng kháng sinh không hợp lý tại các cấp của hệ thống chăm sóc sức khỏe, trong nuôi trồng thủy sản, trong chăn nuôi và trong cộng đồng. Việc nghiên cứu tìm ra các hợp chất mới nhằm bảo vệ cộng đồng trước các tác nhân gây bệnh có tính cấp thiết và ý nghĩa thực tiễn cao.
Việt Nam là một trong những nước nhiệt đới hệ thực vật phong phú với nguồn tài nguyên dược liệu dồi dào, là điều kiện thuận lợi cho việc phát triển các sảm phẩm chăm sóc sức khỏe và làm đẹp từ thiên nhiên. Do đó, các nghiên cứu về các hoạt chất thiên nhiên và nghiên cứu chuyển hóa chúng thành dẫn xuất mới bằng nhiều con đường khác nhau để đánh giá hoạt tính sinh học là một lĩnh vực hấp dẫn và rất quan trọng trong việc phát huy và nâng cao giá trị nguồn dược liệu trong nước.
Cây vối (Cleistocalyx opercculatus) thuộc chi Cleistocalyx là một dược liệu quý được sử dụng nhiều trong y học cổ truyền. Cây mọc nhiều ở vùng nhiệt đới, hoang dại hoặc được trồng ở nhiều nơi trên cả nước đặc biệt nhiều là ở vùng đồng bằng và trung du phía bắc nước ta. Các nghiên cứu khoa học đã công bố về thành phần hóa học cũng như tác dụng sinh học của loài cây này tại Việt Nam khá ít.
Hiện nay chưa có nghiên cứu nào về các tác động của cao chiết thực vật lên các mẫu vi sinh lâm sàng gây nhiễm trùng bệnh viện. Vì vậy chúng tôi thực hiện đề tài luận văn: “Nghiên cứu tác động của cao chiết lá vối (Cleistocalyx opercculatus) lên một số vi khuẩn gây nhiễm trùng thường gặp”
CHƯƠNG I: TỔNG QUAN TÀI LIỆU
Vi khuẩn Staphylococcus aureus và Staphylococcus aureus kháng methicillin (MRSA)
Vi khuẩn Staphylococcus aureus
Staphylococcus aureus (S.aureus hay Tụ cầu vàng) là loại cầu khuẩn, đường kính khoảng 0.8 – 1µm. Vi khuẩn bắt màu thuốc nhuộm Gram dương, nhưng có thể biến thành Gram âm khi về già. Trong bệnh phẩm, vi khuẩn này họp thành từng đôi hoặc đám nhỏ, không di động và sinh nha bào. Tụ cầu vàng là nguyên nhân thông thường nhất gây ra nhiễm khuẩn trong các loài tụ cầu. Nó là một phần của hệ vi sinh vật sống thường trú ở da được tìm thấy ở cả mũi và da. Khoảng 20% dân số loài người là vật mang lâu dài của S. aureus và tỉ lệ có thể lên tới 80% đối với những người làm việc ở các cơ sở y tế, những người sử dụng kim tiêm thường xuyên (như bệnh nhân tiểu đường), bệnh nhân nằm viện và những người có hệ miễn dịch suy yếu [1][2].
Số carotenoid staphyloxanthin làm nên tính chất màu vàng của S. aureus, vốn có thể thấy được từ các khóm cấy trên thạch của vi khuẩn này. Các tụ cầu thiếu sắc tố sẽ dễ dàng bị tiêu diệt bởi hệ thống miễn dịch của cơ thể ký chủ.
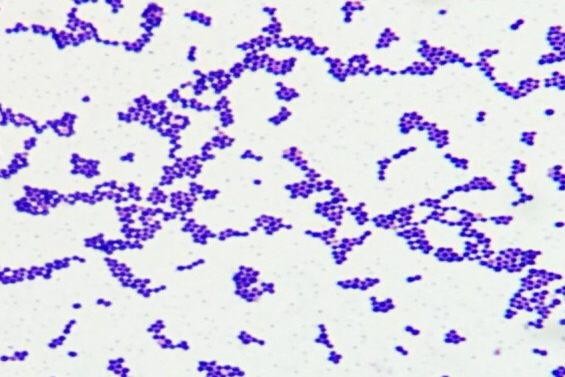
Hình 1.1. Hình ảnh vi khuẩn S. aureus dưới kính hiển vi [2]
- Đặc điểm sinh hóa của vi khuẩn S.aureus
Vi khuẩn này phát triển tốt ở môi trường tổng hợp, đặc biệt ở môi trường thạch máu hoặc huyết thanh. Sinh beta hemolysis trong môi trường thạch máu. Cho kết quả dương tính với phản ứng indol, NH3, thủy phân gelatine, đông huyết tương. Trên môi trường thạch, khuẩn lạc có hình tròn trơn bóng, đục mờ. Trên môi trường lỏng tế bào ở dạng cặn, vòng nhãn mờ trong ống nghiệm ở bề mặt môi trường.
Vi khuẩn này phát triển dễ dàng ở môi trường thông thường, không thể sinh trưởng ở nhiệt độ thấp. Theo Mc Landsborough L. (2005), nhiệt độ sinh trưởng tối ưu của S. aureus là 18 – 40℃, pH = 7,2. Tuy nhiên mọc tốt nhất ở 25℃, hiếu khí hay kỵ khí tuỳ ý. Ở canh thang, sau 5 – 6 giờ làm đục môi trường, sau 24 giờ làm đục rõ. Ở môi trường đặc, khuẩn lạc tròn lồi, bóng láng, óng ánh co thể có màu vàng đậm, màu vàng cam hoặc màu trắng, tương đối lớn sau 24 giờ. Ngoài ra S. aureus có thể sinh trưởng được trên môi trường có hoạt độ thấp hơn các loài vi khuẩn khác hoặc môi trường có nồng độ muối cao.
S.aureus được xác định trên cơ sở các đặc điểm tăng trưởng và phản ứng đông huyết tương của các dòng thuần từ các khuẩn lạc đặc trưng trên môi trường phân lập. Sự hiện diện với mật độ cao của S. aureus trong thực phẩm chỉ thị điều kiện vệ sinh và kiểm soát nhiệt độ kém của quá trình chế biến nên thường có mặt trong nhóm thực phẩm đã được qua chế biến và nấu chín.
S. aureus tương đối chịu nhiệt và thuốc sát khuẩn hơn những vi khuẩn khác, chịu độ khô và có thể sống ở môi trường nồng độ NaCl cao (9%), nhiều chủng tụ cầu vàng đề kháng với penicillin và các kháng sinh khác. S. aureus có phản ứng DNase, catalase (+), chuyển hoá hydrogen peroxide thành nước và oxygen, phosphase (+), có khả năng lên men và sinh acid từ mannitol, trehalose, sucrose, desoxyribonuclease là enzyme phân giải DNA. Tất cả các dòng S. aureus đều mẫn cảm với novobiocine. Hầu hết các chủng tụ cầu đều tạo được enzyme penicillinase (beta – lactamase). Enzyme này phá huỷ vòng beta – lactam, cấu trúc cơ bản của các kháng sinh như penicilline G, ampicilline và ureidopenicilline, làm cho các kháng sinh này mất tác dụng.
- Cấu trúc kháng nguyên:
Các tụ cầu có nhiều loại kháng nguyên: Protein, polysaccharide, acid teichoic ở vách tế bào. Vách tế bào chứa kháng nguyên polysaccharide, kháng nguyên protein A ở bề mặt. Người ta có thể căn cứ vào các kháng nguyên trên để chia tụ cầu thành nhóm, tuy nhiên phản ứng huyết thanh không có giá trị trong chẩn đoán vi khuẩn.

Khả năng gây bệnh của S. aureus là do vi khuẩn phát triển nhanh và lan tràn rộng rãi trong mô cũng như tạo thành nhiều độc tố và enzyme. Trong đó, các độc tố phổ biến do S. aureus tiết ra là hemolysin, leukotoxin, exfoliative toxin, enterotoxin, and toxic-shock syndrome toxin-1 (TSST-1). Một số chủng thuộc loài S. aureus có khả năng sinh tổng hợp enterotoxin khi chúng nhiễm vào thực phẩm.
- Hầu hết các dòng S. aureus có thể tổng hợp enterotoxin trong môi trường có nhiệt độ trên 15℃ hơn cả vi khuẩn. Độc tố ruột enterotoxin sản xuất bởi S. aureus là một protein ổn định nhiệt, nhiều nhất khi tăng trưởng ở nhiệt độ 35 – 37℃ và có thể tồn tại nhiệt ở 100℃ trong vòng 30 – 700 phút.
- Các enzyme ngoại bào:
- Protease phân giải protein của tế bào chủ.
- Lipase phân giải lipid.
- Deoxyribonuclease (DNase) phân giải DNA và các enzyme sửa đổi acid béo (FAME).
Staphylococcus aureus kháng methiclin
Tụ cầu vàng kháng methicilline (Methicillin-Resistant Staphylococcus aureus – MRSA) là một vấn đề y tế toàn cầu và là một thách thức trong điều trị. Hiện nay, MRSA đang gia tăng về tần suất và hiện hữu ở nhiều cơ sở y tế và cộng đồng. Một số chủng MRSA, đặc biệt có nguồn gốc từ cộng đồng (CA-MRSA) sản xuất độc tố Panton- Valentine leukocidin (PVL) liên quan với viêm phổi hoại tử tiến triển nhanh, thường ở những người trước đó khỏe mạnh. Chủng sinh PVL có thể trở nên ngày càng quan trọng khi các chủng CA-MRSA tiếp tục lan truyền vào môi trường bệnh viện [9]. Methicillin là một penicillin bán tổng hợp chống lại men beta-lactamase được giới thiệu vào năm 1959. Ngay sau đó, chủng S.aureus và Staphylococci coagulase âm tính đề kháng methicillin đã được báo cáo. Sự bùng phát của MRSA xảy ra ở châu Âu vào đầu những năm 1960. Ba dòng MRSA gây đại dịch năm 1959 phân lập ở Đan Mạch và Anh. Ngoài ra, loại phân tử của chủng MRSA thu thập từ nhiều khu vực địa lý phát hiện 5 dòng MRSA chính trên toàn thế giới vào năm 2002 [3]. Các dịch do chủng MRSA liên quan cộng đồng đầu những năm 2000 xuất hiện từ chủng của đại dịch trước đó.
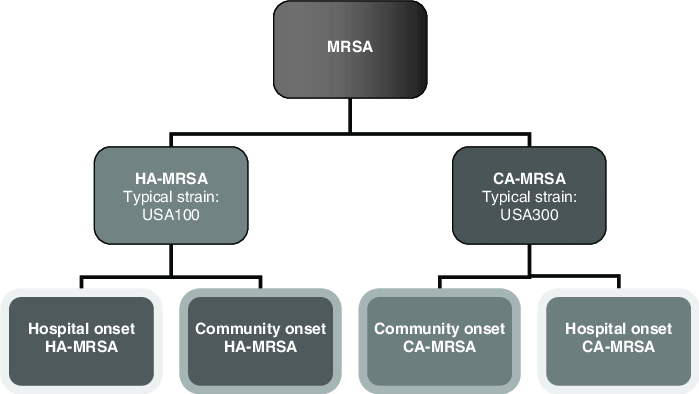
Hình 1.2. Phân loại Staphylococcus aureus kháng methicillin (MRSA) [4]
Kĩ thuật phân tử cho phép xác định chuỗi MRSA bao gồm tụ cầu vàng liên quan đến cộng đồng community-associated (CA) hoặc tụ cầu vàng liên quan đến bệnh viện hospital-associated (HA) MRSA) [4].
- Cơ chế kháng methicillin và cách phát hiện.
Các beta-lactam gắn với các protein gắn penicilin (PBP) cần thiết cho sinh tổng hợp màng tế bào và ngăn hình thành liên kết chéo peptidoglycan, dẫn đến ly giải tế bào vi khuẩn. Đề kháng với beta-lactam của MRSA được tạo ra do một yếu tố di truyền di động, các nhiễm sắc thể băng tụ cầu (SCCmec) mang gen mecA mã hóa PBP biến đổi – PBP2a/PBP 20 – làm giảm ái lực với kháng sinh beta-lactam. Kết quả là sinh tổng hợp màng tế bào của MRSA tiếp tục ngay cả khi có sự hiện diện của kháng sinh beta-lactam. Mặc dù hiếm, kháng methicillin của S. aureus có thể xảy ra bởi các cơ chế khác mecA. Các cơ chế này gồm tăng sản xuất beta-lactamase và biểu hiện chất đồng đẳng mecA, gọi là mecC. Mặc dù methicillin không còn được sản xuất, tên tụ cầu vàng kháng methicillin (MRSA) vẫn tồn tại. Chủng kháng oxacillin hay methicillin thì cũng có thể kháng lại tất cả các thuốc beta lactam, bao gồm cephalosporin (ngoại lệ ceftaroline, là một cephalosporin thế hệ thứ năm). Hiện nay, thử nghiệm tính nhạy cảm thường dùng là oxacillin và/hoặc cefoxitin [5].
Định nghĩa kháng methicillin trong phòng xét nghiệm vi sinh lâm sàng là nồng độ ức chế tối thiểu oxacillin (MIC) ≥ 4 mg/L. Những phương pháp khác phát hiện, như sử dụng xét nghiệm khuếch tán đĩa cefoxitin (30µg) hoặc một số phản ứng chuỗi polymerase để phát hiện các gen mec [5].
Tình hình nhiễm SA và MRSA
Sự hình thành màng sinh học của S. aureus làm tăng khả năng kháng thuốc kháng sinh dẫn đến tỷ lệ nhiễm trùng do S. aureus có tỷ lệ tử vong ngày càng cao. Cụ thể, các ca nhiễm trùng do S. aureus ở Mỹ có tỷ lệ tử vong là 25% [6]. Một nghiên cứu tại Hoa Kỳ tiến hành từ năm 1999 đến 2005 cho thấy rằng năm 1999 có 127036 bệnh nhân mắc MRSA chiếm 43% các loại vi khuẩn gây nhiễm khuẩn bệnh viện, năm 2005 có 278203 bệnh nhân nhiễm khuẩn bệnh viện do MRSA chiếm 53% [7]. Tuy nhiên cũng tại Hoa Kỳ một nghiên cứu được thực hiện trên toàn quốc năm 2011có 80461 nhiễm trùng do MRSA trong số đó 48353 là mắc MRSA tại cộng đồng, 14156 là nhiễm khuẩn bệnh viện. Cũng theo nghiên cứu này từ năm 2005 tỷ lệ mắc ước tính quốc gia đã giảm 27,7% [8].
Tại Việt Nam, đề kháng kháng sinh của S.aureus là vấn đề thời sự của ngành y tế và là thách thức lớn cho điều trị . Theo nhiều nghiên cứu S.aureus là một trong những vi khuẩn thường gặp gây nhiễm trùng bệnh viện. Trong đó tỉ lệ tỷ lệ MRSA/S. aureus chiếm tỉ lệ cao [9][10].
Biofilm và sự hình thành biofilm
Màng sinh học (biofilm) là một cấu trúc phức tạp, được tạo ra bởi các vi sinh vật sinh trưởng và bám dính trên bề mặt chất nền (Dunne, 2002). Màng sinh học có thể được tạo ra từ các nhóm vi sinh vật khác nhau bao gồm vi khuẩn, nấm mốc, nấm men… nhưng phổ biến nhất vẫn là vi khuẩn, các nghiên cứu đã xác định hầu hết các loài vi khuẩn đều có khả năng tạo màng sinh học. Vi khuẩn có thể hình thành màng sinh học trên các loại bề mặt môi trường rắn, lỏng hoặc trên bề mặt môi trường bán lỏng. Quá trình hình thành màng sinh học xảy ra theo một trật tự: bắt đầu bằng sự hấp thụ các hạt dinh dưỡng hữu cơ và vô cơ trên bề mặt môi trường; tiếp đó là sự bám dính của những vi sinh vật đầu tiên vào các hạt dinh dưỡng hữu cơ và vô cơ đó; những vi sinh vật này sinh trưởng và sinh sản tạo thành những khuẩn lạc đầu tiên; sau cùng là sự hình thành phức hệ màng sinh học (Dang & Lovell, 2000). Sự hình thành màng sinh học được xem như là một xu hướng chung của vi khuẩn để sống sót trong tự nhiên (O’Toole & cs., 2000), bởi màng sinh học giúp chúng chống lại các chất kháng sinh, sát trùng, chống lại tác động của một số kim loại nặng, các cation và chất độc; đồng thời bảo vệ tế bào tránh khỏi nhiều yếu tố bất lợi từ môi trường như sự thay đổi độ pH, bức xạ tia cực tím, áp suất thẩm thấu và sự khô hạn (Kokare, 2009) [11].
Màng sinh học của S. aureus, một khi đã được thành lập, sẽ thích nghi với điều trị kháng khuẩn và phản ứng của vật chủ, và do đó là tác nhân gây bệnh của nhiều bệnh nhiễm trùng tái phát. Các bệnh liên quan đến màng sinh học S. aureus đã được ghi nhận [6].
- Viêm tủy xương
Viêm xương tủy xương được định nghĩa là tình trạng nhiễm trùng xương và có thể do nhiều loại vi khuẩn hoặc nấm gây ra. Tuy nhiên, S. aureus cung cấp phần lớn các trường hợp. Vi khuẩn có thể được lây nhiễm vào qua đường máu hoặc trực tiếp khi phẫu thuật, chấn thương hay nhiễm trùng cơ bản. Khi ở trong máu ở chế độ sinh trưởng phù du. S. aureus tăng cường sản xuất chất kết dính cho nhiều phân tử chất kết dính vật chủ như fibrinogen, fibrin, osteopontin, fibronectin, collagen, elastin,v.v… Khi ở trong xương, S. aureus bám vào các khu vực chấn thương và tạo thành một màng sinh học ban đầu [6].
- Viêm nha chu và viêm quanh răng.
S. aureus hình thành màng sinh học trong khoang miệng có thể hoạt động như một ổ gây nhiễm trùng miệng, và tỷ lệ S. aureus trong túi nha chu là 13,4% và 15,8%. Mặc dù mầm bệnh này không liên quan nhiều đến bệnh viêm nha chu nhưng lại liên quan đến các trường hợp khó điều trị hơn [6].
- Viêm nội tâm mạc.
Nhiễm trùng van tim với S. aureus có tỷ lệ mắc bệnh và tử vong cao. Van tim trái rất dễ bị nhiễm trùng. Tỷ lệ tử vong do nhiễm trùng van tim thấp ở những người dưới 50 tuổi, nhưng lớn hơn 50% ở những bệnh nhân lớn tuổi được chẩn đoán lâm sàng là viêm nội tâm mạc do S. aureus [6].
- Nhiễm trùng mắt
Nhiễm trùng mắt liên quan đến màng sinh học S. aureus bao gồm viêm kết mạc, viêm giác mạc và viêm nội nhãn. Staphylococci, đặc biệt là S. aureus, có tỷ lệ phân lập cao nhất với bệnh nhân bị viêm kết mạc, và người ta dự đoán rằng S. aureus kháng kháng sinh methicilline MRSA sẽ phổ biến hơn trong các bệnh nhiễm trùng mắt nghiêm trọng. Ngoài ra, S. aureus là nguyên nhân phổ biến thứ hai gây viêm nội nhãn sau phẫu thuật và sự hình thành màng sinh học có thể đóng một vai trò lớn trong nhiễm trùng này [6].
- Nhiễm trùng màng sinh học đa vi khuẩn.
Vi sinh vật hiếm khi sống trong môi trường biệt lập, mà tồn tại trong các cộng đồng vi sinh vật. Candida albicans và S. aureus đã được đồng nuôi cấy từ bề mặt niêm mạc miệng và âm đạo, cả hai đều biểu hiện các phương thức phát triển của màng sinh học. Điều thú vị là sợi nấm C. albicans có thể xâm nhập vào các tế bào biểu mô của vật chủ, có khả năng tạo lối vào cho các bệnh nhiễm trùng tại chỗ và toàn thân của S. aureus [6].
- Nhiễm trùng vết thương mãn tính.
Màng sinh học của S. aureus có liên quan đến các trường hợp nhiễm trùng vết thương mãn tính như loét bàn chân do tiểu đường, loét ứ đọng tĩnh mạch và loét tì đè. Trên thực tế, S. aureus là vi khuẩn được phân lập phổ biến nhất từ các vết thương nhiễm trùng như vậy và các nghiên cứu liên quan đến bệnh nhân loét tĩnh mạch mãn tính cho thấy S. aureus nuôi cấy dương tính trong 88 – 93,5% các trường hợp nhiễm trùng [11].
- Thành phần màng sinh học
Màng sinh học được cấu tạo từ nhiều tế bào khác nhau của một hay hiều loài vi sinh vật khác nhau, khối lượng tế bào vi sinh vật chiếm từ 2 đến 5% tổng khối lượng biofilm. Trong biofilm ngoài thành phần tế bào thì có thể có tới gần 97% là nước, 3-6% còn lại là EPS và ion. Thành phần polymer ngoại bào rất đa dạng tùy vào từng loại vi sinh vật, dạng biofilm và điều kiện hình thành nhưng về cơ bản thì polysaccharide chiếm khoảng từ 40–95%, từ 1–60% protein, từ 1–10% là acid nucleic và từ 1–40 % lipit về khối lượng polymer.
Các hợp chất này thay đổi theo thời gian và không gian tồn tại của màng sinh học. Về cơ bản, màng sinh học càng dày thì thời gian tồn tại càng lâu có hàm lượng EPS càng nhiều. Sự khuếch tán oxy, chất dinh dưỡng và chất nhận điện tử có thể gây ra biểu hiện gen không đồng nhất trong suốt màng sinh học. Mật độ tế bào tập trung cao nhất ở đỉnh biofilm và giảm dần theo độ sâu. Các tế bào tập trung ở trên bề mặt biofilm có nhiều oxy và chất dinh dưỡng và sự đào thải chất độc diễn ra nhanh chóng nên có tốc độ trao dổi chất nhanh. Các tế bào nằm phía dưới là những tế bào phát triển chậm, không hoạt động hoặc chết, hoặc là vi khuẩn kị khí.
Sự hình thành biofilm ở S. aureus
Sự phát triển màng sinh học của S. aureus được mô tả trong năm giai đoạn:
- Gắn kết: Tế bào S. aureus bám vào bề mặt phi sinh vật hoặc sinh vật thông qua tương tác kỵ nước hoặc MSCRAMM, tương ứng.
- Nhân lên: Sau khi các tế bào gắn vào, màng sinh học phát triển thành một “tấm đệm” hợp lưu của các tế bào bao gồm eDNA và chất nền protein.
- Xuất ngoại: Sau khi đạt đến hợp lưu, một giai đoạn di cư hàng loạt của tế bào xảy ra trong đó một quần thể tế bào được giải phóng khỏi màng sinh học thông qua sự phân hủy eDNA qua trung gian nuclease do Sae điều chỉnh để cho phép hình thành các vi khuẩn hình thoi.
- Trưởng thành: Các vi khuẩn hình thành từ các ổ riêng biệt của tế bào vẫn được gắn trong giai đoạn xuất bào. Giai đoạn này được đặc trưng bởi sự phân chia tế bào nhanh chóng tạo thành các tập hợp mạnh mẽ bao gồm các protein bao gồm PSM và eDNA.
- Phân tán: Quorum sensing qua trung gian Agr được kích hoạt bắt đầu điều khiển ma trận màng sinh học và phân tán tế bào thông qua hoạt hóa protease và / hoặc sản xuất PSM. AtlA, autolysin A; MSCRAMM, các thành phần bề mặt vi sinh vật nhận biết các phân tử ma trận kết dính; eDNA, DNA ngoại bào; PSM, mô đun hòa tan phenol; Agr, bộ điều hòa gen phụ…
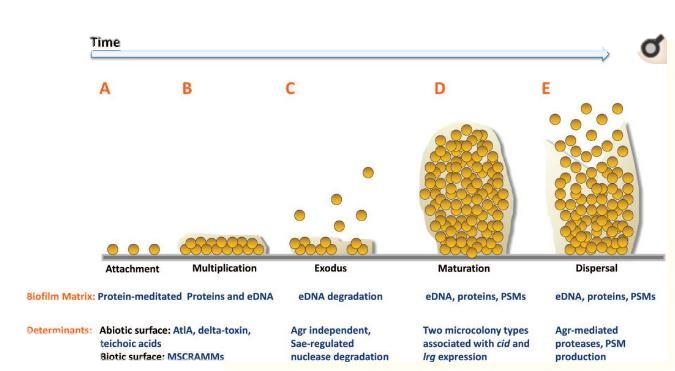
Hình 1.3. Sơ đồ miêu tả sự hình thành biofilm của S.aureus
- Các gen/protein mục tiêu liên quan đến sự hình thành biofilm của S.aureus
S.aureus có thể tạo ra một màng sinh học đa tầng và chúng được bọc trong một lớp glycocalyx hoặc chất nhờn với sự phân bố protein không đồng nhất. Các nghiên cứu đã mô tả thành phần rắn của glycocalyx chủ yếu bao gồm axit teichoic (80%), các protein của tụ cầu và vật chủ. Trong các nghiên cứu sau đó, một loại kháng nguyên polysaccharide cụ thể có tên là polysaccharide intercellular antigen (PIA) đã được phân lập. PIA bao gồm dư lượng N-acetylglucosamine liên kết β-1,6 (80–85%) và một phần anion có hàm lượng thấp hơn dư lượng D-glucosaminyl không N-acetyl hóa chứa phosphate và succinate liên kết este (15– 20%) [12]
- Sự hình thành biofilm liên quan đến PIA
PIA (viết tắt của polysaccharide intercellular antigen) được sản xuất in vitro từ UDP-N-acetylglucosamine thông qua các sản phẩm của locus bám dính gian bào (ica). Các gen và sản phẩm của locus ica (gen điều hòa icaR và gen sinh tổng hợp icaADBC) đã được chứng minh là cần thiết cho sự hình thành và độc lực của màng sinh học và được điều chỉnh để đáp ứng với sự phát triển yếm khí, chẳng hạn như các điều kiện được thấy trong môi trường màng sinh học [12].
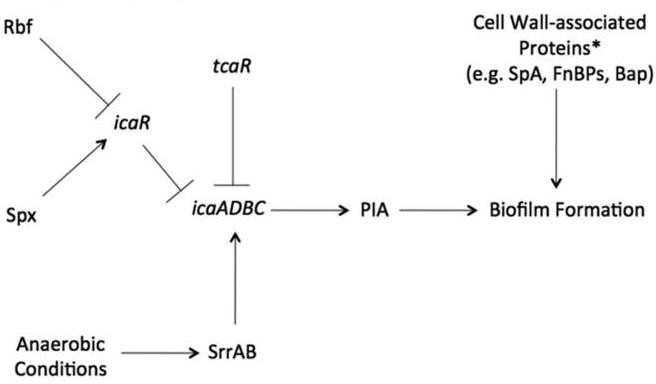
Hình 1.4. Sơ đồ miêu tả sự hình thành biofilm phụ thuộc và không phụ thuộc PIA
Gen sinh tổng hợp chất bám dính ngoại bào – icaADBC, chất điều hòa phiên mã của locus liên kết với teicoplanin – tcaR, gen điều hòa kết dính gian bào – icaR, bộ điều hòa chung của các gen phản ứng với các yếu tố bất lợi từ môi trường – Spx, gen điều hòa protein của quá trình hình thành biofilm – Rbf, gen điều hòa phản ứng của S.aureus – SrrAB, S.aureus protein A – SpA, protein liên kết với Fibronectin – FnBPs, protein liên kết với biofilm – Bap[12].
- Sự hình thành biofilm phụ thuộc PIA
Cơ quan điều hòa phản ứng hô hấp của tụ cầu, SrrAB, chịu trách nhiệm về sự cảm ứng PIA trong môi trường kỵ khí thông qua sự liên kết của trình tự DNA 100 bp ngược dòng của operon icaADBC. Các yếu tố môi trường khác cũng có thể đóng một vai trò trong việc điều chỉnh ica, bao gồm glucose, ethanol, độ thẩm thấu, nhiệt độ và kháng sinh như tetracycline.
Sự biểu hiện cụm gen icaADBC làm tăng sự biểu hiện PIA và từ đó hình thành biofilm. Kìm hãm icaADBC bởi tcaR, icaR, từ đó giảm PIA. Tuy nhiên, chất điều hòa protein của sự hình thành màng sinh học, Rbf, ngăn chặn sự phiên mã của icaR, mặc dù gián tiếp, dẫn đến tăng cường biểu hiện gen ica , sản xuất PIA và hình thành màng sinh học. Trong điều kiện yếm khí, S. aureus sẽ tăng sản xuất SrrAB, gen này làm tăng biểu hiện của icaADBC và tiếp đó là tăng PIA, thúc đẩy hình thành biofilm. Ngoài ra, Spx, một cơ quan điều hòa toàn cầu của các gen phản ứng với căng thẳng, đã được chứng minh là có tác động điều tiết tiêu cực đến sự hình thành màng sinh học, dường như bằng cách điều chỉnh IcaR [12].
- Sự hình thành biofilm không phụ thuộc PIA
Mặc dù tầm quan trọng của locus gen ica trong sự phát triển màng sinh học, nhưng màng sinh học có thể xảy ra theo kiểu độc lập với ica. Hệ thống hai thành phần arlRS đã được chứng minh là ngăn chặn sự phát triển của màng sinh học và khi bị xóa sẽ dẫn đến tăng cường sự gắn kết và sản xuất PIA. Người ta chứng minh được khi đột biến icaADBC của S. aureus thì vẫn có khả năng phát triển màng sinh học. Trong một chủng S. aureus đột biến xóa gen ica, protein A (SpA) nội sinh hay được bổ sung từ bên ngoài đều cần thiết cho sự hình thành màng sinh học. Các protein liên kết với Fibronectin (FnBPs) có thể quy định sự hình thành biofilm thông qua vai trò thiết yếu của cơ chế điều hòa autolysin (Atl và sig β). Ngoài ra, protein liên kết màng sinh học (Bap) và protein liên quan đến Bap của S. aureus có thể tạo ra sự phát triển màng sinh học độc lập với sản xuất PIA thông qua sự kết hợp giữa tế bào với tế bào, và được đặc trưng bởi trọng lượng phân tử cao của chúng, hiện diện trên bề mặt vi khuẩn, đóng vai trò như một yếu tố độc lực và thỉnh thoảng ngăn chặn các yếu tố di động. Các protein này giúp tạo liên kết giữa tế bào – tế bào và liên kết giữa tế bào – chất nền do đó hình thành biofilm [12].
- eDNA và sự hình thành biofilm
Một thành phần quan trọng khác của màng sinh học tụ cầu là DNA ngoại bào (eDNA). Sự có mặt của DNase làm suy giảm eDNA và ức chế hình thành biofilm. Sự giải phóng DNA ngoại bào được thực hiện thông qua sự ly giải tế bào và được kiểm soát bởi biểu hiện lrg và cidA (là các chất điều hòa murein hydrolase) [2]. Murein hydrolase là enzyme thủy phân được tạo bởi vi khuẩn để phân cắt các liên kết cộng hóa trị của peptidoglycan, thành phần chính của thành tế bào [3]. Các chức năng sinh lý của các enzym này bao gồm điều hòa sự phát triển của thành tế bào, sự luân chuyển của peptidoglycan trong quá trình tăng trưởng, phân tách các tế bào con trong quá trình phân bào và tự phân. Tăng cường lrg sẽ ức chế chuỗi quá trình ly giải tế bào, còn cidA tăng ly giải tế bào giải phóng DNA và thúc đẩy biofilm hình thành. Kiểm soát sự ly giải tế bào và giải phóng eDNA là một nhánh khác trong cơ chế điều hòa phức tạp của sự hình thành màng sinh học của S. aureus [12].
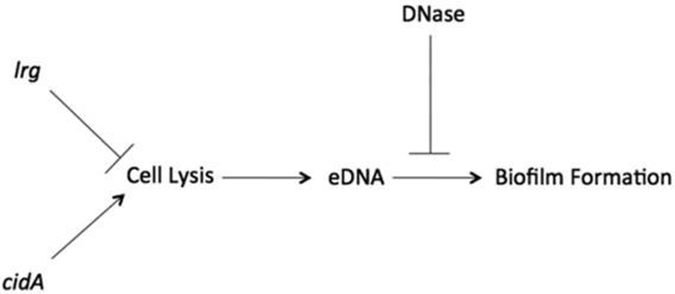
Hình 1.5 eDNA và sự hình thành biofilm eDNA – DNA ngoại bào lrg và cidA – chất điều hòa murein hydrolase và làm chết tế bào
Điều hòa gen agr/ sarA/ sig B
Sự biểu hiện của gen sarA làm giảm protease/nuclease nhịu nhiệt và tác động đến sự hình thành màng sinh học. Theo Karen E. Beenken và cộng sự đã chứng minh rằng, khả năng hình thành màng sinh học bị giảm trong thể đột biến sarA [11].
Sự hình thành màng sinh học có thể được phục hồi ở các thể đột biến sarA bằng cách đồng thời gây đột biến gen nuc – mã hóa nuclease có khả năng điều nhiệt của S. aureus hoặc bổ sung các chất ức chế protease. Bằng cách ức chế sự biểu hiện gen nuc hoặc hoạt động của protease, sự biểu hiện sarA có thể ngăn chặn sự suy thoái của DNA và protein ngoại bào, những thành phần quan trọng trong cấu trúc màng sinh học [12].
Sự kìm hãm agr đã được chứng minh là cần thiết cho sự hình thành màng sinh học và cảm ứng agr thông qua các peptit tự động cảm ứng (auto-inducing peptides – AIP), một thành phần thiết yếu của hệ thống quorum sensing. Màng sinh học chưa trưởng thành tăng mật độ tế bào cho đến khi màng sinh học trưởng thành phát triển. Ở giai đoạn này, mật độ AIP trong cộng đồng vi khuẩn đạt đến ngưỡng cảm nhận đại số và gây ra biểu hiện của gen agr. Cảm ứng của agr dẫn đến điều hòa biểu hiện của peptide, protease và nuclease có thể điều chỉnh nhiệt có bản chất giống chất tẩy rửa; dẫn đến việc sự tách rời và giải phóng các tế bào vi khuẩn khỏi màng sinh học trưởng thành, được gọi là sự phát tán hạt giống [12].
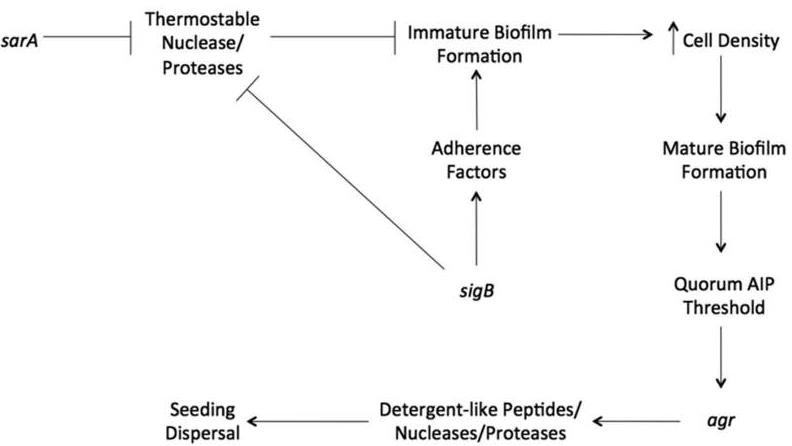
Hình 1.6. Agr/Sar/sigB tác động lên sự hình thành biofilm sarA – bộ điều chỉnh phụ kiện tụ cầu; sig β – sigma β ; AIP – peptit tự động cảm ứng; agr – bộ điều hòa gen phụ
Mức độ kiểm soát bổ sung được thực hiện thông qua sản phẩm operon sig β – yếu tố cần thiết cho giai đoạn đầu của sự hình thành màng sinh học. Sig β điều chỉnh yếu tố vón cục (fibronectin binding protein A – FnbpA) và coagulase; và được điều chỉnh bởi các gen operon rsbU, rsbW và rsbV. Coagulase là một loại enzyme protein được sản xuất bởi một số vi sinh vật cho phép chuyển fibrinogen thành fibrin có vai trò quan trọng trong liên kết màng sinh học. Sig β làm giảm sản xuất protease chịu nhiệt nhưng cũng thúc đẩy các yếu tố bám dính hỗ trợ hình thành biofilm trong giai đoạn đầu. Màng sinh học chưa trưởng thành tăng mật độ tế bào cho đến giai đoạn trưởng thành. Lúc này, mật độ peptide tự động cảm ứng – AIP trong ma trận ngoại bào đạt ngưỡng kích thích và gây ra biểu hiện bộ điều hòa gen phụ của S. aureus – agr. Agr cảm ứng dẫn đến tạo một loại peptide/protease/ nuclease có bản chất như chất tẩy rửa, tạo các lỗ thủng trên màng và giải phóng vi khuẩn. Đây được gọi là sự phát tán hạt giống. Ngoài ra, các yếu tố liên quan đến sự phát tán hạt giống và kiểu hình sinh vật phù du, bao gồm β-hemolysin, enterotoxin β, serine protease (SplA), cysteine protease (SplB), metalloprotease Aur, staphopain và leukotoxin D đều được kiểm soát [12].
Vi khuẩn Klebsiella pneumoniae
Đặc điểm
Klebsiella pneumoniae là loại vi khuẩn rất phổ biến trong thiên nhiên (nước, đất), nó có trong hệ vi khuẩn bình thường ở ruột người trưởng thành với số lượng nhỏ (dưới 102 vi khuẩn/1g phân), có thể gặp ở đường hô hấp trên của người, là tác nhân “gây bệnh cơ hội”. Trong bệnh phẩm Klebsiella pneumoniae có hình trực khuẩn ngắn, gram âm, bắt màu đậm ở hai cực, thường đứng thành đôi. Vi khuẩn này có nhiều hình thể, có khi như cầu khuẩn, có khi lại hình dài, có vỏ, không di động, không sinh nha bào [13].
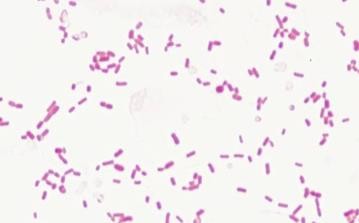
Hình 1.7. Hình ảnh vi khuẩn Klebsiella pneumoniae trên tiêu bản nhuộm Gram
- Tính chất nuôi cấy: Vi khuẩn dễ mọc trên môi tường nuôi cấy thông thường. Trên thạch dinh dưỡng hay thạch máu, khuẩn lạc lầy nhầy, màu xám. Trong canh thang vi khuẩn, vi khuẩn mọc nhanh và đục đều, ở đáy ống có lắng cặn[3].
- Tính chất sinh vật hóa học: Lên men nhiều loại đường sinh acid và hơi như: Glucose, lactosen manit. Phản ứng indol âm tính, phản ứng đỏ metyl âm tính, phản ứng VP dương tính, phản ứng citrat dương tính, urease dương tính, H2S âm tính [13].
- Cấu trúc kháng nguyên: Kháng nguyên thân O: Có 5 type. Kháng nguyên vỏ K có bản chất là polysaccarit, mang tính chất đặc hiệu type, có 80 type huyết thanh khác nhau, trong đó type 1 và type 2 hay gặp nhất trong nhiễm khuẩn đường hô hấp.
- Khả năng gây bệnh cho người: Klebsiella pneumoniae là loại vi khuẩn gây bệnh có điều kiện gọi là “gây bệnh cơ hội”. Những nhiễm trùng cơ hội chủ yếu xảy ra ở môi trường bệnh viện và trên những bệnh nhân bị suy kiệt, suy giảm miễn dịch. Những điều kiện để các nhiễm trùng cơ hội xuất hiện bao gồm việc sử dụng kháng sinh rộng rãi và thiếu thận trọng làm mất thế quân bình của vi khuẩn chí bình thường, đồng thời làm cho vi khuẩn được chọn lọc bởi kháng sinh và tạo nên sức đề kháng đối với kháng sinh. Ngoài ra, các thủ thuật như nội soi, thông tim… được phát triển và áp dụng ngày càng nhiều trong các bệnh viện. Khi áp dụng thủ thuật này có thể đưa vi khuẩn vào cơ thể qua ống thông… Thêm vào đó, những bệnh nhân mà sức đề kháng giảm sút nghiêm trọng do mắc các bệnh làm suy giảm miễn dịch (Ví dụ: K máu, suy tủy…) [13].
Những bệnh do Klebsiella pneumoniae gây ra
- Nhiễm trùng đường hô hấp dưới như viêm phổi, viêm phế quản phổi thứ phát sau cúm, sau sởi, sau ho gà hoặc ở các bệnh nhân đang hồi sức hô hấp (đang dùng máy hô hấp nhân tạo).
- Nhiễm trùng máu: Thường gặp ở những bệnh nhân bị suy kiệt như xơ gan, ung thư máu, suy tủy…
Ngoài ra Klebsiella pneumoniae còn có thể gây nhiễm trùng đường tiết niệu, đường mật hoặc đường sinh dục, viêm màng não, viêm tai, viêm xoang và viêm nội tâm mạc.
Các yếu tố liên quan đến độc lực của Klebsiella pneumoniae
- Vỏ và Lipopolysaccharide
Các chủng K. pneumoniae, đặc biệt là các chủng phân lập lâm sàng, thường xuyên tạo ra một vỏ polysaccharide nhớt. Phức hợp sinh hóa của những vỏ này làm phát sinh việc sản xuất kháng nguyên đặc hiệu cho chủng các vật liệu vỏ. Hiện tại, có hơn 77 loại kháng nguyên khác nhau của vỏ do Klebsiella sản xuất. Các chủng và các kháng nguyên này đã được sử dụng để phân biệt giữa các chủng trong quá trình nhiễm trùng lâm sàng. Mặc dù nhiễm trùng ở người không thể quy cho một loại huyết thanh vỏ riêng biệt, hầu hết các phân lập lâm sàng K.pneumoniae thuộc về một số lượng tương đối nhỏ của các kiểu huyết thanh. Các bệnh nhiễm trùng được mô tả gần đây do K. pneumoniae dẫn đến sinh mủ phổ biến nhiễm trùng thường do K1 serotype gây ra. Các loại huyết thanh K2 thường được kết hợp với UTIs nhất
F:\TÀI LIỆU ĐÃ LƯU\TÀI LIỆU NĂM 2022\NĂM 2022 KHO SỐ 2\LUẬN VĂN HÓA HỌC-LÁ VỐI/ LUẬN VĂN THẠC SĨ HOÀNG THANH TRUNG 29.7
Nghiên cứu tác động của cao chiết lá vối (Cleistocalyx opercculatus) lên một số vi khuẩn gây nhiễm trùng thường gặp


