
Nghiên cứu ảnh hưởng của một số yếu tố môi trường đến thành phần loài và phân bố của giáp xác (Malacostaca: Crustacea) ở sông Tranh huyện Bắc Trà My
Lớp Giáp xác (hay còn gọi là động vật thân giáp), thuộc ngành Chân khớp (Arthropoda) là lớp có thành phần loài rất phong phú trong tự nhiên, đóng vai trò quan trọng trong các hệ sinh thái nước ngọt và trong đời sống con người. Tại các thủy vực nước ngọt, giáp xác tham gia vào các quá trình chuyển hóa vật chất và năng lượng, là mắt xích quan trọng trong mạng lưới thức ăn của thủy vực và tạo sự cân bằng cho các thủy vực. Ngoài ra, nhiều loài còn là sinh vật chỉ thị để đánh giá chất lượng nước ở các thủy vực.
Huyện Bắc Trà My, tỉnh Quảng Nam có diện tích tự nhiên 823,05 km2, là một trong những huyện thuộc vùng núi cao của tỉnh Quảng Nam, Bắc Trà My là đầu nguồn quan trọng cung cấp nước cho hệ thống sông Vu Gia – Thu Bồn và một số sông suối ở cánh Bắc tỉnh Quảng Ngãi. Sông Tranh là đoạn thượng lưu và trung lưu của sông Thu Bồn chảy qua các xã Trà Đốc, Trà Bui, Trà Tân, Trà Sơn, Trà Giác ngoài việc cung cấp nước phục vụ cho sản xuất nông nghiệp, sinh hoạt và xây dựng các công trình thủy điện thì sông Tranh cũng là nơi cung cấp thực phẩm hằng ngày cho người dân địa phương từ nguồn lợi thủy sản.
Tuy nhiên, trong thời gian qua do ảnh hưởng của biến đổi khí hậu cùng với các tác động của con người vào tự nhiên để xây dựng cơ sở hạ tầng. Ngoài ra việc phát triển thủy điện và động đất xuất hiện ở khu vực cũng làm ảnh hưởng đến dòng chảy và suy giảm chất lượng nước từ đó ảnh hưởng đến sự đa dạng và phân bố của các loài giáp xác nơi đây.
Trong thời gian qua cũng chưa có nghiên cứu khoa học nào về động vật giáp xác ở khu vực sông Tranh. Do đó, việc nghiên cứu ảnh hưởng của một số yếu tố môi trường đến thành phần loài và phân bố của giáp xác là cơ sở cho việc xây dựng phương án bảo vệ, khai thác hợp lý và sử dụng lâu dài nguồn lợi thủy sản tại đây.
Xuất phát từ những lý do trên, chúng tôi lựa chọn đề tài: “Nghiên cứu ảnh hưởng của một số yếu tố môi trường đến thành phần loài và phân bố của giáp xác (Malacostaca: Crustacea) ở sông Tranh, huyện Bắc Trà My, tỉnh Quảng Nam”.
2. Mục tiêu nghiên cứu của đề tài
2.1. Mục tiêu tổng quát
Xác định một số yếu tố môi trường ảnh hưởng đến thành phần loài và sự phân bố của giáp xác cỡ lớn ở nước tại sông Tranh, huyện Bắc Trà My, tỉnh Quảng Nam nhằm góp phần vào công tác điều tra về nguồn lợi và tính đa dạng sinh học về thành phần loài của lớp giáp xác tại đây. Từ đó, làm cơ sở khoa học cho việc xây dựng phương án khai thác hợp lý, quy hoạch, phát triển bền vững và bảo tồn đa dạng sinh học.
2.2. Mục tiêu cụ thể
– Xác định được thành phần loài của lớp giáp xác tại sông Tranh, huyện Bắc Trà My, tỉnh Quảng Nam.
– Xác định được khu vực phân bố của các loài giáp xác, đặc điểm phân bố, các yếu tố ảnh hưởng đến sự phân bố giáp xác ở sông Tranh, tỉnh Quảng Nam.
– Tìm hiểu mối liên quan giữa các động vật lớp giáp xác ở các thủy vực với một số yếu tố môi trường nước.
– Nắm được tình hình khai thác và tiềm năng phát triển nguồn lợi thủy sản để sử dụng bền vững các nhóm động vật này.
– Đề xuất được các nhóm giải pháp khả thi về quản lý và sử dụng nguồn lợi thủy sản theo hướng bền vững.
3. Đối tượng và phạm vi nghiên cứu
3.1. Đối tượng nghiên cứu
Các loài thuộc lớp giáp xác (Malacostaca: Crustacea), bao gồm các loài Giáp xác cỡ lớn ở nước tại sông Tranh, huyện Bắc Trà My, tỉnh Quảng Nam.
3.2. Phạm vi nghiên cứu
Công tác khảo sát thực địa, thu thập mẫu vật được tiến hành 8 đợt thu mẫu, mỗi đợt 2-3 ngày, trong thời gian từ tháng 3/2016 đến tháng 10/2016, đại diện cho cả hai mùa, mùa khô và mùa mưa, tại 10 điểm thu mẫu thuộc sông Tranh, huyện Bắc Trà My, tỉnh Quảng Nam.
4. Ý nghĩa khoa học và ý nghĩa thực tiễn của đề tài
4.1. Ý nghĩa khoa học
Cung cấp một cách có hệ thống về thành phần loài, phân bố, sự biến động về thành phần loài, mức độ đa dạng sinh học, mối tương quan giữa các yếu tố môi trường với các loài Giáp xác cỡ lớn ở nước tại khu vực nghiên cứu.
4.2. Ý nghĩa thực tiễn
Là cơ sở khoa học cho việc xây dựng các kế hoạch, giải pháp khả thi nhằm quản lí, bảo tồn và sử dụng hợp lý tài nguyên sinh vật; quy hoạch và phát triển bền vững nguồn lợi các loài giáp xác cỡ lớn ở nước tại đây.
5. Những đóng góp mới của đề tài
– Lần đầu tiên cung cấp một cách có hệ thống về thành phần loài và hiện trạng ĐDSH các loài giáp xác cỡ lớn ở nước tại sông Tranh, huyện Bắc Trà My, tỉnh Quảng Nam.
– Cung cấp dẫn liệu về sự biến động thành phần loài và phân bố giáp xác cỡ lớn ở khu vực nghiên cứu do ảnh hưởng của các yếu tố môi trường.
Luận văn gồm có:
Mở đầu
Chương 1:Tổng quan tài liệu
Chương 2 : Thời gian, địa điểm và phương pháp nghiên cứu
Chương 3: Kết quả nghiên cứu và bàn luận
Kết luận và kiến nghị
Danh mục tài liệu tham khảo
Phụ lục
1.1. TÌNH HÌNH NGHIÊN CỨU VỀ ĐỘNG VẬT GIÁP XÁC CỠ LỚN TRÊN THẾ GIỚI
Việc nghiên cứu về thuỷ sinh học nói chung và Giáp xác cỡ lớn nói riêng trên thế giới đã có từ rất sớm ở các nước châu Âu và cũng bắt đầu ở các nước châu Á vào những năm giữa thế kỷ XIX. Bắt đầu với những công trình Nghiên cứu về động vật Giáp xác nhỏ trong nước hồ ở Đức của Muller (1845) và của Eransmus ở Thụy Sỹ, thuật ngữ “plankton” lần đầu tiên được đề xuất [16].
Vấn đề nghiên cứu thành phần loài và sự phân bố của Giáp xác cỡ lớn nước ngọt trong khu vực Đông châu Á đã được nhiều tác giả nghiên cứu từ những năm giữa cuối thế kỷ XIX với những công trình đầu tiên của De Man (1892), Kemp (1918), Bouvier (1904, 1919, 1925). Trong số những công trình này phải kể đến công trình rất lớn của De Man (1892) nghiên cứu về tôm nước ngọt thuộc các họ Palaemonidae và Atyidae ở vùng Đông Ấn Độ, Indonesia và các vùng lân cận. Trong công trình này, kết quả nghiên cứu thành phần loài các giống Palaemon, Macrobrachium, Caridina đã tìm thấy, trong đó có nhiều loài mới được mô tả. Một công trình lớn khác nghiên cứu về tôm thuộc họ Palaemonidae của Holthuis (1950), từ kết quả của các chuyến khảo sát Siboga (1899-1900) và Snellius (1929-1930) ở vùng phía Tây Thái Bình Dương. Công trình đã công bố thành phần loài tôm Palaemonidae đã tìm thấy, trong đó có các loài tôm nước ngọt thuộc các giống Palaemon, Macrobrachium [16, 20].
Vào những năm 30 của thế kỷ XX, đã có nhiều công trình nghiên cứu về các loài tôm thuộc họ Atyidae ở Trung Quốc, trong đó tiêu biểu là các công trình của Yu (1938), Shen (1948) đã mô tả nhiều loài mới cho vùng này. Tuy nhiên, phải tới cuối thế kỷ XX cho tới nay, nghiên cứu về tôm Atyidae ở Trung Quốc mới được chú ý và nghiên cứu nhiều hơn với những công trình nghiên cứu của Liang, Yang, Cai (1996) đã đạt được nhiều thành tựu quan trọng. Một tập động vật chí Trung Quốc (tập 36) đã được công bố riêng về tôm Atyidae (Liang X. Q., 2003) bao gồm 130 loài và phân loài thuộc 74 giống, trong đó giống Caridina có 25 loài, Neocaridina 12 loài, còn lại các loài thuộc các giống Typhlocaridina, Paracaridina và Manicaris [19, 20].
Ituo Kubo (1938) đã nghiên cứu khu hệ tôm Atyidae ở Nhật Bản, kết quả nghiên cứu tác giả đã công bố thành phần loài tôm Atyidae của Nhật Bản, bao gồm 11 loài và phân loài thuộc 4 giống (Atya, Paratya, Caridina, Neocaridina). Trong đó, giống Caridina chiếm nhiều loài nhất (5 loài), còn các giống khác có số loài ít hơn. Về khu hệ tôm Atyidae Nhật Bản, gần đây còn có nhiều công trình nghiên cứu của Cai, Shigemitsu, Kiyoshi (2006), tu chỉnh phân loại học một số loài tôm Caridina Nhật Bản do Stimpson (1860) công bố trước đây [19], [20].
Tại Philippin, từ nửa đầu thế kỷ XX đã có nhiều công trình nghiên cứu về tôm Atyidae, trong đó phải kể đến các công trình của Blanco (1935, 1939) và gần đây là công trình của Chace (1997), công bố các kết quả nghiên cứu tôm Atyidae của chuyến khảo sát Albatros (1907-1910) tại Philippines và công trình nghiên cứu của Cai (2004) với 41 loài tôm thuộc các giống Atyoida, Atyopsis và Caridina, trong đó nhiều nhất là giống Caridina (38 loài). Năm 2004 có các công trình nghiên cứu của Cai và Anker đã bổ sung nhiều loài và giống mới cho khu hệ tôm Atyidae của Philippin, bao gồm 19 loài, trong đó nhiều loài mới được mô tả gồm Parisia macrophora, Caridina sama, C. gortio, C, minidentata. Trong khi đó tại Myanmar, tôm Atyidae còn được nghiên cứu rất ít. Công trình nghiên cứu đầu tiên của Kemp (1918) chỉ cho biết 2 loài. Cho đến năm 2000, có các công trình nghiên cứu của Cai và Peter mới bổ sung thêm 3 loài mới được mô tả gồm: C.williamsin, C.rangoira, và C.burmensis. Tại Indonesia, tôm Atyidae được nghiên cứu từ rất sớm vào những năm cuối của thế kỷ XIX, trong đó phải kể đến Công trình nghiên cứu của De Man (1892) về tôm, cua của vùng này. Kết quả nghiên cứu tác giả đã công bố 11 loài thuộc các giống Atya (2 loài) và Caridina (9 loài), trong đó có nhiều loài mới được mô tả. Đến năm 1978, tôm Atyidae của Indonesia đã được Holthuis nghiên cứu và bổ sung 4 loài cho vùng này gồm: Atya spinipes, A. pilipes, C. sundanella, C. celebensis. Tại Singapore, tôm Atyidae đã được nghiên cứu bởi các công trình của Peter (1990, 1991), Satish và Choy, các tác giả đã ghi nhận 5 loài tôm Caridina đã biết và một loài tôm Caridina mới được mô tả là Caridina temasek [19], [20].
Về tôm nước ngọt Palaemonidae có tầm quan trọng về kinh tế nên đã được nghiên cứu đầy đủ hơn so với tôm Atyidae. Cho tới nay đã thống kê được 276 loài thuộc 13 giống của họ này, trong đó giống Macrobrachium có thành phần loài lớn nhất, phân bố phổ biến ở vùng Đông và Nam châu Á gồm khoảng 220 loài và phân loài sống ở nước ngọt và nước lợ. Trung Quốc là nước có số loài Macrobrachium phong phú, với 33 loài đã được nghiên cứu và công bố từ những năm 30 của thế kỷ XX bởi Yu (1931) và sau đó được nhiều tác giả điều tra phát hiện và bổ sung gồm Dai (1984), Liu et al. (1990), Cai et al. (1999), Shy et al. (1998) và nhất là công trình tổng hợp về tôm Palaemonidae công bố trong tập 44 của Động vật chí Trung Quốc do tác giả Li và Liu et al. biên soạn năm 2007. Nhiều loài tôm thuộc giống Macrobrachium mới cho khoa học đã được công bố ở Trung Quốc, có 11 loài được coi là đặc hữu của Trung Quốc (45,8%) (Rung, T. C., 2009). Ở Nhật Bản, trên phần lãnh thổ chính, tôm Palaemonidae nước ngọt ít được nghiên cứu, cho tới nay, mới được ghi nhận có 4 loài. Trong khi đó, thành phần loài tôm Macrobrachium ở quần đảo Ryukyu (Nam Nhật Bản) có tới 12 loài. Tại Philippines, thành phần loài tôm Palaemonidae (Macrobrachium) nước ngọt khá phong phú, đã thống kê được 20 loài, trong đó có một số loài phân bố rộng trong khu vực như: M. nipponense, M. rosenbergii, M. equidens, M. lar, M. mammiladactylus, M. latidactylus… và một số loài đặc trưng cho Philippines như: M. jaroense, M. lanceifrous, M.conlesi…. Thành phần loài tôm Palaemonidae (Macrobrachium) ở Malaysia và Singapore cũng đã được nhiều tác giả nghiên cứu, trong đó phải kể đến các công trình của Peter (1989, 1990, 1994, 1995) và của Choy (1989, 1990). Các tác giả này đã đưa một danh lục bao gồm 15 loài tôm Macrobrachium ở vùng này, với những loài phổ biến trong khu vực như M. latidactylus, M. rosenbergii, M. sintangense, M. equidens, M. pilimanus, M. lar, và một số loài đặc trưng cho vùng này, như: M. alkowi, M. palawaense, M. tronfii, M. malayanus, M. sabanus, M. rodochiie, M. clymene, M. oxyphilus, M. gua, M. platycheles. Tại Indonesia, thành phần loài tôm Palaemonidae nước ngọt (Macrobrachium) đã được nghiên cứu từ rất sớm bởi những chuyến khảo sát Sibora (1899-1900) và Snellius (1929-1930). Kết quả nghiên cứu các tác giả đã công bố có 9 loài phân bố trong khu vực và có 7 loài đặc trưng cho vùng này như: M. joppae, M. jacobsoni, M.horstii, M. palaemonoides, M. placidum, M. bariense, M. callirhoe. Trong khi đó, tôm Palaemonidae tại Thái Lan, trong vùng Đông Dương và gần sát với Việt Nam trong lưu vực sông Mê Kông cũng đã được nghiên cứu từ rất sớm bởi các tác giả De Man (1879), Lanchester (1902), Kemp (1918), đã phát hiện ra các loài M. rosenbergii, M. sintangense, M. lanchesteri và M. latidactylus. Sau đó thành phần loài tôm nước ngọt Thái Lan còn được bổ sung nhiều loài mới như M. pilimanus, M. mirabile (Suvatii, 1937, 1950, 1967), M. hirsutimanus (Tiwari, 1952), M. asperulum, M. esculentum, M. nipponensis (Liuribol, 1980), M. niphanae (Takeda, 1989). Gần đây nhất, thành phần loài tôm Macrobrachium Thái Lan đã được tổng hợp lại và lập danh lục 25 loài trong đó có 3 loài mới được mô tả (M. dolatum, M. thai, M. tratense). Có thể coi đây là danh lục thành phần loài đầy đủ nhất về tôm Macrobrachium ở Thái Lan hiện nay [20].
Tại Lào, tôm nước ngọt còn ít được nghiên cứu. Gần đây có công trình mới được công bố của Yukio Hamura et al, 2011, cho biết, tôm Macrobrachium (Plaemonidae) trong các thuỷ vực thuộc lưu vực sông Mekong ở Lào, có 11 loài gồm những loài đã biết trong khu vực như: M. amplimanus, M. rosenbergii, M. dienbienphuense, M. eriocheirum, M. niphanae, M. nipponense, M. yui… Đáng lưu ý là, bằng phương pháp nghiên cứu phân loại học phân tử, phân tích gen ty thể 16S rRNA, các tác giả đã chứng minh 3 loài có quan hệ phân loại gần: M. dienbienphuense, M. amplimanus, M. eriocheirum, đều là các loài riêng biệt [20].
Về cua nước ngọt, tại khu vực phía Đông châu Á đã được nghiên cứu từ đầu thế kỷ XX, với những công trình điều tra về thành phần loài ở vùng Indonesia (De Man, 1892), Thái Lan và Annam (Kemp, 1923), Trung Quốc và Đông Dương (Rathbun, 1904, 1905). Tuy nhiên, phải từ nửa sau thế kỷ XX mới có hàng loạt công trình khảo sát cơ bản quan trọng về thành phần loài cua nước ngọt ở khu vực này, chủ yếu là các nhóm cua Potamoidea và Gecarcinucoidae của nhiều tác giả, như: Bott (1966, 1968, 1970), Dai (1995, 1997, 1999), Naiyanetr (1988), Naiyanetr and Dai (1997), Peter (1988), Yeo (1998, 2007). Tại Trung Quốc, thành phần loài cua nước ngọt thuộc các họ Potamidae và Parathelphusidae đã được Dai (1999) công bố có hệ thống trong tập 17 của Bộ động vật Chí Trung Quốc, sau đó được bổ sung bảng các kết quả nghiên cứu mới nhất của Shih et Peter 2011, chủ yếu thuộc 2 họ Potamidae (3 giống 247 loài) và Parathelphusidae (27 loài). Nhiều giống mới đặc trưng cho cua nước ngọt vùng Trung Quốc đã được xác lập như Sinopotamon (84 loài), Huananpotamon (11 loài), Nanhaipotamon (11 loài), Chinapotamon (6 loài), Aparapotamon (11 loài), Tenuilapotamon (8 loài), Yarepotamon (4 loài), Bottapotamon (4 loài), Neilupotamon (4 loài) [20], [41].

Tại các đảo và quần đảo ở phía đông châu Á (Hải Nam, Đài Loan, Philippin) cũng đã được nhiều tác giả nghiên cứu. Trên đảo Hải Nam (Trung Quốc), đã thống kê được 9 loài thuộc 3 giống cua Potamidae, đó là các giống Apotamonautes, Neotiwaritamon và Hainanpotamon. Đây là các giống và loài đặc hữu của đảo này (Yeo and Naruse, 2007; Dai, 1995; Shih et al, 2009). Tại Đài Loan đã mô tả được 42 loài cua với các giống ưu thế đặc trưng gồm Geothelphusa (38 loài), Candidiopotamon (1 loài), Nanhaipotamon (2 loài) và Somannithelphusa (1 loài) [41]. Tại Philippin, thành phần loài cua nước ngọt đã được công bố trong các công trình của Bott, 1960; Peter and Takeda 1992, 1993. Trong đó, họ Potamidae gồm có 5 giống với 3 giống đã biết Isolapotamon (2 loài), Tiwaripotamon (1 loài), Nanhaipotamon (1 loài) và 3 giống mới đặc trưng cho quốc đảo này gồm Ovitamon (2 loài), Isulamon (1 loài) và Mindoron (1 loài). Họ Parathelphusidae gồm các giống: Sundathelphusa (6 loài), Mainitria (1 loài) và Parathelphusa (8 loài) [20].
Tại Nhật Bản, cua nước ngọt trên phần lãnh thổ chính và đảo Rykyus đã được nghiên cứu bởi Hsih and Peter, 2011. Kết quả nghiên cứu tác giả đã công bố tại đây có 23 loài thuộc các giống đặc trưng Amamikit (2 loài), Candidipotamon (3 loài), Geothelphusa (17 loài) và Ryukyum (1 loài) [41]. Thành phần loài cua nước ngọt Thái Lan đã được công bố nhiều trong những năm 90 cuối thế kỷ XX bởi các công trình nghiên cứu của Naiyanetr (1992, 1993, 1994, 1995) và Peter (1993, 1995). Chỉ từ 1978 tới 1998, các tác giả này đã mô tả khoảng 30 loài mới thuộc các họ Potamidae, Gecarcinucidae, Parathelphusidae từ các vùng khác nhau ở Thái Lan. Có thể nói trong khu vực Đông Nam Á, đây là nơi thành phần loài cua nước ngọt được nghiên cứu đầy đủ hơn cả. Nhiều giống mới đã được xác lập: Dromothelphusia, Thaipotamon, Kempotamon (Potamidae), Siamthelphusa, Heterrothelphusa, Mekhongthelphusa, Chulathelphusa, Sayamia, Esanthelphusa (Parathelphusidae), Thaksinthelphusa (Gecarcinucidae). Nhóm loài cua Potamidae các giống Potamon (Silato), Larnaudia, Demanietta có số loài nhiều nhất (khoảng 30 loài) rồi đến các loài cua thuộc họ Parathelphusidae, trong đó giống Somanniathelphusa (khoảng 11 loài). Các giống cua mới được mô tả như: Thaipotamon, Kempotamon, Thaksinthelphusa… có thể coi như những giống đặc hữu cho vùng này [20].
Tại Malaysia và Singapore cua nước ngọt cũng được nhiều tác giả nghiên cứu, trong đó phải kể đến là các công trình của Lanchester (1900, 1901) mô tả một số loài thuộc giống Parathelphusa, công trình của Roux (1934, 1936) mô tà 5 loài thuộc giống Potamon (Potamiscus). Công trình tiếp theo của Bott (1966, 1970) mô tả thêm 1 loài và 4 phân loài mới thuộc các giống Somaniathelphusa, Siamthelphusia, Stoliczia (Johora). Năm (1985) Peter đã mô tả thêm 22 loài và phân loài mới ở Malaysia và Singapore. Cho tới cuối những năm 1980, thành phần loài cua nước ngọt tại Malaysia và Singapore đã biết gồm các họ Potamidae với các giống Johora (11 loài), Stoliczia (13 loài), Terrapotamon (1 loài), họ Parathelphusidae với các giống Irmengardia (2 loài), Parathelphusa (2 loài), Siamthelphusa (1 loài), Somanniathelphusa (1 loài), Heterothelphusa (1 loài), Salangathelphusa (1 loài) [20].
Tại Indonesia, cua nước ngọt cũng đã được nhiều tác giả nghiên cứu, trong đó phải kể đến các công trình của Bott (1970) đã thống kê được 10 loài thuộc các giống Sundathelphusa, Parathelphusa (5 loài), Nautilothelphusa (2 loài) ở vùng Sulawesi. Công trình nghiên cứu của Oliver, Chia và Peter (2006) đã cho ra một danh lục loài cua nước ngọt vùng này tương đối đầy đủ hơn với 24 loài, thuộc 5 giống Sundathelphusa (3 loài), Nautilothelphusa (1 loài), Migmathelphusa (1 loài), Parathelphusa (17 loài), Syntripsa (2 loài). Trong số này, các giống Syntripsa, Migmathelphusa là các giống mới được xác lập [20].
Ngoài ra, nghiên cứu về tôm, cua nước ngọt còn có các công trình mô tả nhiều giống và loài mới như: Yeo và Naiyanetr (1999) mô tả 3 giống cua mới ở bắc Lào cùng với những lưu ý về loài Potamiscus (Ranguna) pealianoides Bott, 1966 (Crustacea, Decapoda, Brachyura, Potamidae) [35], Yeo và cộng sự mô tả một giống cua mới thuộc họ Potamidae ở Thái Lan vào năm 2000, một loài cua mới thuộc giống Esanthelphusa tại Lào vào năm 2004 và 3 loài cua mới thuộc giống Hainanpotamon tại Trung Quốc, Việt Nam và Lào vào năm 2007 [37, 38, 39], Naiyanetr (2001) mô tả một loài cua mới thuộc họ Potamidae tại Thái Lan [32], Hanamura và cộng sự (2011) nghiên cứu về giống Macrobrachium Bate, 1868 thu được từ hệ thống sông của Lào ghi nhận được 4 loài mới cho khoa học và 11 loài mới cho Lào, các tác giả cũng chứng minh mối liên hệ giữa các loài thuộc giống này có quan hệ gần với khu hệ tôm nước ngọt Bắc Việt Nam [31]. Nguyễn Văn Xuân (2012) mô tả loài tôm mới thuộc giống Macrobrachium thu được từ hồ Tonle Sap của Campuchia, tác giả cũng ghi nhận tầm quan trọng về giá trị kinh tế và nơi sống của loài này [33].
Từ năm 2002 đến 2008, dự án “Đánh giá ĐDSH động vật nước ngọt (FADA)” với sự tài trợ của nhiều tổ chức như: Tổ chức bảo tồn ĐDSH (CBD), Trung tâm nghiên cứu Quốc gia Pháp (CNRS),…nhằm đánh giá tổng quan về mức độ ĐDSH ở bậc giống và loài động vật, thực vật trong các hệ sinh thái nước ngọt trên thế giới đã được thực hiện bởi 163 nhà khoa học trên thế giới nghiên cứu trên nhiều loài động vật nước ngọt, trong đó nghiên cứu về Giáp xác có: Yeo và cộng sự (Crustacea: Decapoda: Brachyura) [40], De Grave và cộng sự (Crustacea: Decapoda: Caridea) [30]…. Kết quả nghiên cứu cho thấy đã mô tả 125.531 loài động vật nước ngọt, chiếm 9,5% tổng số loài động vật được công bố trên toàn cầu (1.324.000 loài). Trong đó Crustacea: 11.990 loài, chiếm 10%. Các kết quả nghiên cứu này đã thống kê cơ bản hiện trạng ĐDSH động vật ở nước ở các bậc phân loại khác nhau cùng với vùng phân bố của chúng. Đây là những công trình có giá trị, góp phần quan trọng vào công tác nghiên cứu phân loại học và địa động vật học về động vật ở nước, đặc biệt là ĐVKXS [28].
Một trong những hướng nghiên cứu về ĐVKXS nước ngọt là nghiên cứu tương quan giữa quần xã ĐVKXS nước ngọt với các yếu tố môi trường nước như pH, nhiệt độ, độ cao, DO, TDS… và thành phần vật chất tầng đáy. Người ta thường sử dụng các phần mềm để xử lý số liệu nhằm xác định đặc tính cấu trúc, phân bố và mối quan hệ giữa quần xã sinh vật với các yếu tố môi trường như pH, nhiệt độ, độ cao và thành phần vật chất tầng đáy. Theo Braak và Verdoschot (1995), CCA là một trong những phương pháp phổ biến được sử dụng trong các nghiên cứu thủy sinh vật học. Trong đó Giáp xác cỡ lớn ở nước là một trong những đối tượng được nghiên cứu. Phương pháp CCA thường được sử dụng nhằm xác định các thành phần môi trường trong hệ sinh thái, trong đó đặc biệt là các thành phần môi trường là yếu tố giới hạn của hệ sinh thái [44]. Lonergan và cộng sự (1996) sử dụng phương pháp CCA đã xác định mối tương quan của 72 loài ĐVĐ với các yếu tố môi trường như pH, nồng độ canxi, độ dẫn, màu sắc và đặc điểm hình thái trong 45 hồ ở Canada. Kết quả đã xác định được Hyallela azteca là loài có chỉ thị tốt nhất đối với pH [42]. Hunt và cộng sự (2003) dựa vào phương pháp CCA để đánh giá tương quan giữa các yếu tố môi trường và ĐVKXS ở nước của 16 suối tại Oklahoma (Mỹ), kết quả đã cho thấy 3 yếu tố là độ cao, DO và kích thước vật chất tạo nền đáy có ảnh hưởng lớn nhất đến sự phong phú và cấu trúc thành phần loài ĐVKXS [43].
Có thể nói rằng, các nghiên cứu về ĐVKXS ở nước ngọt nói chung và Giáp xác cỡ lớn nước ngọt nói riêng trên thế giới đã có từ rất sớm, bắt đầu từ những năm cuối thế XIX tại châu Âu. Tại châu Á sang những năm giữa thế kỷ XX việc nghiên cứu về Giáp xác cỡ lớn mới phát triển mạnh mẽ. Trong giai đoạn đầu các nghiên cứu chỉ tập trung chủ yếu nghiên cứu thành phần loài, phân loại học, đặc điểm sinh học, sinh thái học của loài. Sau này khi có sự ra đời của các thiết bị trợ giúp như vợt ao (Pond net), thiết bị thu mẫu định lượng (gầu Petersen), đĩa Secchi,… và các phần mềm trợ giúp xử lý và phân tích số liệu phục vụ cho công tác nghiên cứu thì các hướng nghiên cứu tập trung vào nghiên cứu định lượng, mối tương quan giữa sinh vật với môi trường, ứng dụng vào đánh giá chất lượng môi trường nước.
1.2. TÌNH HÌNH NGHIÊN CỨU ĐỘNG VẬT GIÁP XÁC CỠ LỚN Ở VIỆT NAM
Cùng với sự phát triển của thế giới, ở Việt Nam, việc nghiên cứu về Giáp xác được thực hiện từ rất sớm, tuy nhiên do chiến tranh kéo dài nên việc nghiên cứu không được thực hiện nhiều, cho đến khi nước nhà thống nhất, với sự phát triển của đội ngũ các nhà khoa học cùng với nhu cầu phát triển của đất nước thì việc nghiên cứu được tiến hành mạnh mẽ và toàn diện hơn. Với đặc thù về lịch sử như vậy việc nghiên cứu ĐVKXS tại Việt Nam được chia thành hai giai đoạn chính là trước cách mạng tháng 8 năm 1945 và sau cách mạng tháng 8 năm 1945 [16].
Giai đoạn trước năm 1945: Những dữ liệu sớm nhất về tôm, cua nước ngọt ở Việt Nam đã có từ rất sớm, trong giai đoạn này đất nước đang trong thời kỳ chiến tranh chưa dành được độc lập, các nghiên cứu chủ yếu tập trung vào phân loại và sự phân bố địa lý, đều do các tác giả người nước ngoài thực hiện. Trong thời kỳ này có công trình nghiên cứu của Edwardo (1869) đã mô tả loài cua nước ngọt Thelphusa longipes (Potamon longipes) được tìm thấy ở Côn Đảo, và công trình của Thalwitz (1891) công bố loài tôm Palaemon nipponensis tìm thấy ở Trung Bộ (Annam). Năm 1904, De Man công bố kết quả khảo sát tôm, cua nước ngọt của đoàn khảo sát Pavie thực hiện trong vùng Đông Dương, mở rộng sang cả Thái Lan, Miến Điện (Myanmar), Malaysia (Mission Pavie – III, 1904), với 28 loài tôm cua nước ngọt, trong đó có 3 loài cua (Parathelphusa sinensis, Potamon longipes, P.cochinchinensis) và 2 loài tôm (Palaemon nipponensis, P. cascinus (= Macrobrichium rosenbergii). Có thể coi đây như những dữ liệu đầu tiên về tôm, cua nước ngọt ở vùng này. Rathbun (1902, 1906) nghiên cứu về cua nước ngọt ở Việt Nam, thành phần loài cua nước ngọt Việt Nam được tác giả này công bố gồm 15 loài, trong đó có 11 loài ở Nam Việt Nam (Cochinchine) và chỉ có 4 loài ở Bắc Việt Nam (Tonkin) (Potamon tannanti, P. orleansi, Parathelphusa sinensis, P. germaini). Thành phần loài này sau đó còn được Balss (1914) bổ sung 2 loài (Potamon frustorferi, Geothelphusa annamensis) và Kemp (1923) bổ sung thêm 6 loài và phân loài, tất cả đều ở Nam Việt Nam [10, 16, 20]; Richard (1894), Brehm (1852), Stingelin (1905) và Daday (1907) nghiên cứu về giáp xác; thành phần về loài tôm sau đó được các tác giả khác bổ sung như Solllaud (1914) và Bouvier (1904, 1920, 1925) [10], [12], [15], [16].
Giai đoạn từ năm 1945 đến nay: Các nghiên cứu về ĐVKXS nói chung và Giáp xác nói riêng trong giai đoạn này đã có sự phát triển rõ rệt. Trong giai đoạn này có nhiều công trình nghiên cứu do các nhà khoa học Việt Nam thực hiện. Đồng thời, việc thành lập nhiều cơ sở nghiên cứu thủy sinh học nước ngọt đã bước sang thời kỳ mở rộng và hiện đại. Trong thời kỳ này, giai đoạn trước 1975 ở miền Nam còn chiến tranh, hoạt động nghiên cứu còn nhiều hạn chế, các công trình nghiên cứu chủ yếu thực hiện ở miền Bắc Việt Nam. Nhất là sau năm 1975, khi nước nhà được thống nhất, việc nghiên cứu giáp xác đã có những bước phát triển mới với lực lượng khoa học thống nhất cả nước, được tổ chức lại phục vụ yêu cầu xây dựng và phát triển đất nước [10], [15], [16].
Trong giai đoạn từ 1945 đến 1975, các nghiên cứu về Tôm nước ngọt (Macrura) tại miền Bắc, có thể kể đến các công trình của Đặng Ngọc Thanh (1961, 1967), Đặng Ngọc Thanh và Nguyễn Huy Yết (1972) đã bổ sung một số loài mới cho Bắc Việt Nam, đồng thời các tác giả xem lại vấn đề danh pháp và vị trí phân loại của nhiều loài tôm đã biết trước đây. Các tác giả đã ghi nhận một số loài tôm gồm những loài đã biết, như: Macrobrachium nipponense, M. hainanense, Leander mani, Coutierella sinensis đã tìm thấy ở các thuỷ vực Bắc Việt Nam, mô tả một số loài mới như M. vietnamense, M. dienbienphuense, Caridina denticulata vietnamensis một số loài cua như: Potamon luangprabangense, Geothelphusa glabra. Ở miền Nam Việt Nam, trong giai đoạn này hầu như không có công trình nào thực hiện [13], [20].
Từ sau 1975 đến nay, hoạt động nghiên cứu về tôm, cua nước ngọt diễn ra mạnh mẽ và toàn diện hơn. Mở đầu cho giai đoạn này, có thể kể đến công bố của Đặng Ngọc Thanh (1975), tổng hợp kết quả điều tra thống kê thành phần loài tôm, cua nước ngọt ở miền Bắc Việt Nam, lần đầu đưa ra một danh lục gồm 27 loài tôm, cua đã thấy trong các thủy vực ở Bắc Việt Nam, trong đó có 9 loài tôm thuộc họ Palaemonidae với 2 loài mới được mô tả (M. yeti và M. mieni), 7 loài tôm thuộc họ Atyidae với 3 loài mới được mô tả (Caridina subnilotica, C. acuticaudata, C. flavilineata) và 11 loài cua thuộc các họ Potamidae và Parathelphusidae với 2 loài mới được mô tả (Somanniathelphusa kyphuensis, Potamiscus cucphuongensis) [13], [14], [18], [19], [20].
Nghiên cứu về tôm nước ngọt, công trình của Đặng Ngọc Thanh et al (1980) còn ghi nhận và mô tả mới 8 loài thuộc giống Caridina (Caridina serrata serrata, C. serrata cucphuongensis, C. subnilotica, C. acuticaudata, C. tonkinensis, C. vietnamensis, C. flavilineata, C. cantonensis) [12]. Đến năm 1999, Cai và cộng sự (1999) công bố một loài tôm Atyidae mới cho khoa học ở Việt Nam với tên khoa học là Caridina clinata [29]. Nguyễn Xuân Quýnh và Peter et Liang (2002) cũng mô tả 2 loài mới khác là Caridina nguyeni và C. caobangensis [20]. Gần đây, Đặng Ngọc Thanh và Đỗ Văn Tứ (2007) đã công bố danh sách 14 loài tôm thuộc họ Atyidae đã biết ở Việt Nam, trong đó có 6 loài mới trong nhóm tôm Atyidae ở Việt Nam (C. pseudoserrata, C. subropunctata, C. vietriensis, C. uminensis, C. haivanensis và C. pseudoflavilineata) [17], [18], [19].
Ở miền Nam, có các công trình nghiên cứu của Nguyễn Văn Xuân (1978,1979, 1981, 1992, 2003, 2004, 2006, 2010, 2011) về tôm Palaemonidae nước ngọt và nước lợ vùng phía Nam Việt Nam, tác giả này đã ghi nhận một số loài tôm nước ngọt thấy có ở miền Nam Việt Nam, như: M. equidens, M. rosenbergii, M. lar, M. sintangense, M. nipponense, M. latidactylus, M. yui, M. mirabile, M. lanchesteri, M. hainanense, M. formosense, đồng thời cũng mô tả một số loài mới như: M. dalatense, M. suongae, M. thuylami, M. saigonense được tìm thấy ở vùng Tây Nguyên (Lâm Đồng, Gia Lai), Sài Gòn – Đồng Nai, Palaemonetes camranhi ở vùng nước lợ Cam Ranh. Đến năm 1998, Đặng Ngọc Thanh đã bổ sung thành phần loài cơ bản của Palaemonidae ở Nam Việt Nam và đặc điểm phân bố. Đến năm 2001, Đặng Ngọc Thanh và Hồ Thanh Hải (2001) đã miêu tả và định loại thành phần loài Palaemonidae ở Việt Nam bao gồm 24 loài thuộc 6 giống [10], [12], [13], [15].
Các nghiên cứu về cua nước ngọt (Brachyura), có thể kể đến các công trình tiêu biểu của Đặng Ngọc Thanh và Hồ Thanh Hải (2001) công bố cua nước ngọt Việt Nam gồm 19 loài, thuộc 8 giống và 2 họ Potamidae và Parathelphusidae. Tiếp theo sau đó nhờ những hoạt động mở rộng khảo sát nghiên cứu tới các thủy vực ở vùng cao Tây Nguyên được thực hiện trong những năm 2000 mà trước đây chưa được nghiên cứu, đã mở rộng hơn nhiều những hiểu biết về thành phần phân loại học cua nước ngọt ở Việt Nam, đặc biệt là về họ Potamidae đặc trưng cho các suối vùng núi. Từ những kết quả nghiên cứu này, Đặng Ngọc Thanh và Hồ Thanh Hải (2002, 2003, 2005, 2007, 2008) đã xác lập các giống mới thuộc họ Potamidae phù hợp với những ý tưởng mới về giống cua Potamon Savigney (sensu lato) có ở Việt Nam, có thể là những giống đặc trưng cho vùng này, đó là: Vietopotamon 2002 (loài chuẩn: Vietopotamon aluoiensis Dang et Ho), Villopotamon 2003 (loài chuẩn: Villopotamon thaii Dang et Ho), Donopotamon 2005 (loài chuẩn: Donopotamon haii Dang et Ho), Dalatopotamon 2007 (Dalatopotamon sonii = Potamon loxophrys Kemp, 1923), Balssipotamon 2008 (Potamon frushtorferi, Balss, 1914) [13], [14], [20].
Gần đây, có nhiều công trình của các tác giả nước ngoài về cua nước ngọt Việt Nam. Đặc biệt, năm 1999, Yeo và Nguyễn Xuân Quýnh công bố thêm một loài cua mới cho khoa học ở Việt Nam, đó là Somanniathelphusa dangi. Cùng với việc bàn luận về đặc điểm hình thái, vị trí phân loại của 4 loài cua thuộc giống Somanniathelphusa đã được Đặng Ngọc Thanh công bố trước đây [36].
Về giống cua Orientalia Dang đã được xác lập trước đây, cũng đã được bổ sung một số loài mới ở Trung Bộ (Orientalia rubra, O. tankiensis) (Dang et Tran, 1992). Cũng ở Trung Bộ, một giống cua ở cạn trong hang được phát hiện ở vùng núi Quảng Bình Nemoron nomas (Peter, 1996) [20].
Cùng với sự tham gia của các tác giả nước ngoài, một số loài cua mới thuộc nhóm cua Potamon tananti Rathbun, 1904 đã được phát hiện ở miền Bắc Việt Nam như Potamon jinpinense Dai, Potamon cua (Yeo and Peter, 1998). Họ Potamidae ở Việt Nam còn được bổ sung thêm một số giống loài mới từ công trình của Tohru Naruse, N. X, Quynh và Yeo, 2011; đó là: indochinamon bavi, I. dangi, I. phongnha. Ngoài ra, còn các công trình của Yeo và Naruse, 2007 bổ sung loài Hainanpotamon auriculatum; công trình của Peter and Yeo, 2001, bổ sung loài Tiwaripotamon edostilus. Cùng với họ Potamidae, cua họ Parathelphusidae cũng được bổ sung thêm một số loài mới tìm thấy ở vùng đồng bằng Bắc Bộ và vùng Đông Nam Bộ, đều thuộc giống Somanniathelphusa như S. triangularis được mô tả từ vùng Bình Phước miền Nam Việt Nam (Đặng Ngọc Thanh, Hồ Thanh Hải, 2005), S. pax. được tìm thấy ở Hà Nội – Đông Bắc Bắc Bộ (Peter and Kosuge, 1995), S. dangi. (Yeo & N. X. Quynh, 1999), cũng được tìm thấy ở Hà Nội [15], [16], [20].
Ngoài việc nghiên cứu về Giáp xác nước ngọt thì việc nghiên cứu về các loài Giáp xác cỡ lớn tại các vùng triều cũng được nhiều nhà khoa học quan tâm nghiên cứu. Vào những năm 1970 – 1971, viện nghiên cứu biển tiến hành điều tra nguồn lợi động vật vùng triều Nam Hà và nguồn giống tôm, cua, cá ở các sông Ba Lạt, Ninh Cơ, Đáy. Kết quả cho thấy, hầu hết các đối tượng có giá trị kinh tế thuộc Giáp xác cỡ lớn được phát hiện ở rừng ngập mặn (Nguyễn Xuân Dục, 1995) [23].
Nghiên cứu về khu hệ ĐVKXS nước ngọt: có những nghiên cứu nhằm bổ sung, hoàn thiện khu hệ ĐVKXS nước ngọt Việt Nam, sắp xếp và bổ sung về vị trí phân loại một số nhóm đã biết. Các nghiên cứu có tính chất toàn diện về ĐVKXS nước ngọt ở miền Bắc Việt Nam là của Đặng Ngọc Thanh (1980), Đặng Ngọc Thanh và cộng sự (1980). Gần đây, có nhiều công trình nghiên cứu về thành phần loài, đặc trưng phân bố, miêu tả thêm loài mới hoặc tu chỉnh vị trí phân loại nhiều nhóm ĐVKXS nước ngọt. Trong đó, công trình được xem là có tính tổng hợp về các nghiên cứu thủy sinh học thủy vực nước ngọt nội địa Việt Nam là “Thủy sinh học các thủy vực nước ngọt nội địa Việt Nam” (Đặng Ngọc Thanh và cộng sự, 2002). Ngoài ra, đã có những công trình chuyên khảo về một số nhóm ĐVKXS được công bố như: “Động vật chí Việt Nam, tập 5” (Đặng Ngọc Thanh và Hồ Thanh Hải, 2001), “Tôm, cua nước ngọt Việt Nam” (Đặng Ngọc Thanh và Hồ Thanh Hải, 2012) [13], [15], [20].
Theo Nguyễn Xuân Quýnh và cộng sự (2007, 2008) về thành phần ĐVKXS ở nước sông Đáy, sông Nhuệ (thuộc địa phận tỉnh Hà Nam) đã xác định được 150 loài thuộc 70 họ, 11 lớp, 6 ngành ĐVKXS. Chỉ số đa dạng H’ trung bình của sông Đáy là 2.48 (tính cho nhóm ĐVN). Sông Nhuệ có chỉ số đa dạng H’ trung bình là 1,64. Trong 2 năm 2006-2007 [9].
Theo kết quả nghiên cứu của Hồ Thanh Hải và Đặng Ngọc Thanh (2005), nghiên cứu tại các thủy vực nước ngọt nội địa ở Đồng bằng sông Cửu Long xác định được 98 loài giáp xác, gồm Cladocera: 38 loài, Copepoda: 30 loài, tôm cua nước ngọt: 25 loài, trai, ốc có 62 loài, giun nhiều tơ có 24 loài, giun ít tơ có 16 loài, trùng bánh xe 83 loài, ấu trùng, côn trùng ở nước có 27 họ. Trong nghiên cứu này các tác giả đã nhận xét: khu hệ ĐVKXS ở đây mang nhiều sắc thái của vùng Ấn Độ – Mã Lai [3].
Ở đồng bằng sông Cửu Long, Nguyễn Văn Thường (2002) đã thu mẫu và phân tích thành phần loài tôm, mẫu chủ yếu thu ở cửa sông và vùng sông Tiền, sông Hậu. Kết quả tác giả đã xác định được 18 loài thuộc 6 giống, 3 họ trong nhóm tôm Caridea và 32 loài, 8 giống, 4 họ thuộc nhóm tôm Pennaeidea. Ngoài ra còn xác định được phân bố địa lý của các loài tôm cũng như các loài tôm có giá trị kinh tế quan trọng [26].
Trong dự án “Downstream Mekong River Wetlands Ecosystem Assessment” do Mai Trọng Thông, Viện Địa lý, thuộc Viện khoa học và công nghệ Việt Nam tham gia thực hiện (năm 2005) đã đánh giá thành phần loài thủy sản nói chung và Giáp xác cỡ lớn nói riêng tương đối đầy đủ, trong đó có 25 loài tôm, cua [45].
Đỗ Văn Nhượng (1996) nghiên cứu về thành phần ĐVĐ ở rừng ngập mặn Cần Giờ, TP. Hồ Chí Minh. Trong kết quả nghiên cứu tác giả đã xác định được 40 loài Giáp xác cỡ lớn [25].
Theo kết quả nghiên cứu của Hoàng Ngọc Khắc (2010), nghiên cứu về giáp xác lớn và Thân mềm ở sông Hồng (từ Phú Thọ đến Ba Lạt) đã xác định được 248 loài Giáp xác lớn, thân mềm ở khu vực này. Trong đó, bổ sung 53 loài ghi nhận mới cho khu vực nghiên cứu, 38 loài cho khu vực miền Bắc và 26 loài lần đầu được ghi nhận ở Việt Nam. Tác giả phân tích đặc trưng phân bố, biến động số lượng, đánh giá nguồn lợi sinh vật và những yếu tố tác động tới nguồn lợi này [21].
Trong khi đó, tại miền Trung, việc nghiên cứu về ĐVKXS nói chung và Giáp xác nói riêng cũng đã có nhiều tác giả đã nghiên cứu, trong đó có thể kể đến một số công trình sau:
Hoàng Ngọc Khắc (2005) nghiên cứu về khu hệ ĐVĐ ở rừng ngập mặn cửa sông Lạch Vạn (Diễn Châu, Nghệ An). Kết quả nghiên cứu tác giả đã xác định được 39 loài Giáp xác cỡ lớn [24].
Tại Quảng Trị, Hoàng Đình Trung (2012) nghiên cứu về thành phần loài ĐVĐ ở hạ lưu sông Hiếu, tỉnh Quảng Trị, kết quả nghiên cứu tác giả đã xác định được 18 loài Giáp xác, thuộc 3 họ, trong đó họ Atyidae có 12 loài, họ Potamidae có 2 loài và họ Parathelphusidae có 4 loài [8].
Tại Thừa Thiên Huế, theo kết quả nghiên cứu của Hoàng Thị Bình Minh và cộng sự (2011), nghiên cứu tài nguyên sinh vật các thủy vực nước ngọt nội địa tỉnh TT. Huế, đã xác định được 65 loài ĐVN và 51 loài ĐVĐ. Thành phần loài của các thủy vực có sự khác nhau theo mùa và theo các dạng thủy vực. Đối với ĐVN, thủy vực sông và hồ chứa các loài mùa khô cao hơn mùa mưa, trong khi đó hồ tự nhiên, ao và ruộng lại có số lượng loài mùa mưa cao hơn mùa khô. Đối với ĐVĐ, thủy vực sông, hồ chứa và ao có số lượng loài mùa khô cao hơn mùa mưa, trong khi đó hồ tự nhiên lại có xu hướng ngược lại. Riêng ở ruộng có số lượng loài ĐVĐ không thay đổi theo mùa [4].
Trong khi đó tại Tây Nguyên có nghiên cứu của Lê Hùng Anh và cộng sự (2013), nghiên cứu về đa dạng ĐVKXS cỡ lớn tại Tây Nguyên và các loài có nguy cơ bị đe dọa. Các tác giả đã xác định được có 60 loài ĐVĐ, bao gồm 17 loài Giáp xác và 43 loài trai ốc, trong đó có 5 loài được coi là đặc hữu ở Việt Nam [2].
Việc nghiên cứu sử dụng sinh vật chỉ thị để đánh giá chất lượng môi trường nước cũng được nhiều nhà khoa học quan tâm. Đây là hướng nghiên cứu ứng dụng ĐVKXS vào thực tiễn. Trong hướng nghiên cứu này, người tiên phong là Nguyễn Xuân Quýnh và cộng sự (2000, 2001, 2004) đã đưa ra khóa định loại đến họ các nhóm ĐVKXS nước ngọt phục vụ cho việc nghiên cứu đánh giá chất lượng nước bằng sinh vật chỉ thị là ĐVKXS cỡ lớn [6], [7], [34].
Việc nghiên cứu ảnh hưởng của các yếu tố sinh thái lên ĐVKXS ở nước cũng đã được nhiều nhà khoa học nghiên cứu: Nguyễn Xuân Quýnh (1985) nghiên cứu về sông Tô Lịch đã kết luận tình trạng ô nhiễm của sông Tô Lịch ảnh hưởng đến sự phân bố của ĐVKXS. Cụ thể, ở những đoạn mà có nước thải của các nhà máy thải ra nhiều thì số lượng loài sẽ thấp hơn ở những đoạn không có thất thải của nhà máy thải ra, môi trường có phần tốt hơn [5];
Như vậy, việc nghiên cứu ĐVKXS nói chung và Giáp xác cỡ lớn nói riêng ở Việt Nam cũng xuất hiện rất sớm từ những năm nửa cuối thế kỷ XIX, tuy nhiên do trong thời kỳ này đất nước đang còn chiến tranh nên việc nghiên cứu chỉ do các tác giả người nước ngoài thực hiện. Vào những năm nửa cuối thế kỷ XX mới có các công trình nghiên cứu của các tác giả trong nước, cho đến sau 1975 khi nước nhà thống nhất các hoạt động nghiên cứu mới diễn ra mạnh mẽ. Trong giai đoạn đầu các tác giả cũng chỉ tập trung vào việc phân loại, nghiên cứu sự phân bố và đặc điểm sinh thái, sang những năm 80 của thế kỷ XX các tác giả đã bắt đầu nghiên cứu ảnh hưởng của các yếu tố sinh thái lên ĐVKXS. Và những năm đầu của thế kỷ XXI thì các tác giả đã bắt đầu nghiên cứu sử dụng ĐVKXS làm sinh vật chỉ thị để đánh giá chất lượng môi trường nước. Trong hướng nghiên cứu này, Nguyễn Xuân Quýnh và cộng sự (2000, 2001, 2004) đã đưa ra khóa định loại đến họ các nhóm ĐVKXS nước ngọt phục vụ cho việc nghiên cứu đánh giá chất lượng nước bằng sinh vật chỉ thị là ĐVKXS cỡ lớn.
Có thể nói rằng, mặc dù trong những năm qua đã có rất nhiều tác giả trong và ngoài nước quan tâm nghiên cứu về Giáp xác cỡ lớn tại Việt Nam, việc thống kê thành phần loài và đặc điểm sinh thái của chúng đã thực hiện một bước đáng kể, song chưa thể coi là hoàn tất được, sắp tới cần có thêm nhiều nghiên cứu chuyên sâu hơn nữa để bổ sung thêm cho khoa học Việt Nam. Bên cạnh nghiên cứu về Giáp xác, các tác giả cũng rất quan tâm nghiên cứu về ĐVKXS ở nước tại Việt Nam. Ngoài nghiên cứu về phân loại, các tác giả còn đi sâu vào nghiên cứu ứng dụng để đáp ứng nhu cầu phát triển của khoa học công nghệ, phát triển kinh tế xã hội và bảo tồn ĐDSH.
1.3. TÌNH HÌNH NGHIÊN CỨU ĐỘNG VẬT GIÁP XÁC CỠ LỚN NƯỚC NGỌT Ở QUẢNG NAM
Về nghiên cứu động vật giáp xác cỡ lớn nước ngọt ở Quảng Nam phải kể đến các công trình nghiên cứu tiêu biểu như:
Nghiên cứu của Vũ Thị Phương Anh, Hoàng Văn Mỹ (2016) về giáp xác cỡ lớn nước ngọt tại sông Tiên, huyện Tiên Phước, tỉnh Quảng Nam đã xác định được 29 loài giáp xác cỡ lớn thuộc 9 giống và 4 họ [27].
Đây là các công trình nghiên cứu về Giáp xác cỡ lớn ở Quảng Nam mà chúng tôi biết được từ trước đến nay. Có thể nói, nghiên cứu về đa dạng sinh học nói chung, về giáp xác nói riêng ở các hệ thống sông tỉnh Quảng Nam còn ít và chưa có hệ thống. Đặc biệt các nghiên cứu về biến động thành phần loài giáp xác cỡ lớn do xây dựng hồ chứa hay do tác động môi trường, hoạt động đánh bắt vẫn chưa được chú trọng.
1.4. ĐIỀU KIỆN TỰ NHIÊN – KINH TẾ XÃ HỘI VÙNG NGHIÊN CỨU
Huyện Bắc Trà My có diện tích tự nhiên là: 823,05 km2, là một trong những huyện thuộc vùng núi cao của tỉnh Quảng Nam, nằm ở 15017‘13” đến 18018‘00” vĩ độ Bắc, 1080 09‘16” đến 108017‘58” kinh độ Đông. Cách thành phố Tam Kỳ 50km về hướng Tây Nam; phía Bắc giáp huyện Bắc Trà My và Hiệp Đức, phía Nam giáp huyện Nam Trà My, phía Đông giáp tỉnh Quảng Ngãi, phía Tây giáp huyện Phước Sơn.
Huyện Bắc Trà My có ba dạng địa hình cơ bản, gồm địa hình núi cao, địa hình đồi thấp, địa hình thung lũng và suối. Núi cao nhất của huyện là Hòn Bà (1.347m) thuộc xã Trà Giang, huyện Bắc Trà My [28].
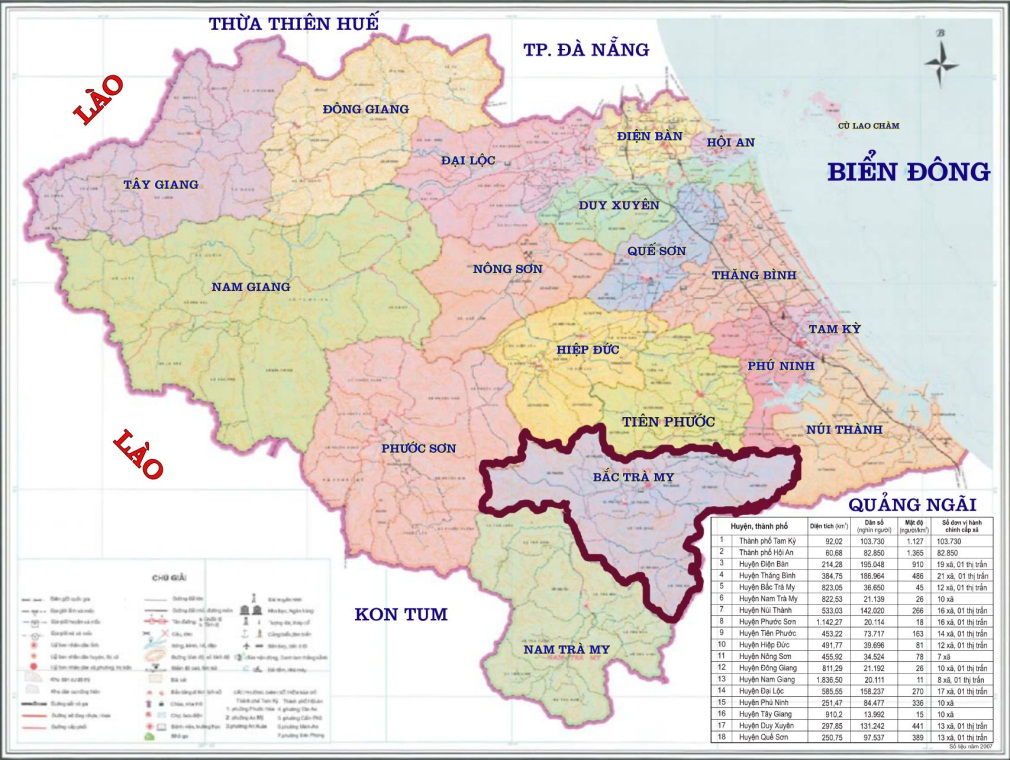
Hình 1.1. Bản đồ vị trí huyện Bắc Trà My
Theo tài liệu Niên giám thống kê huyện Bắc Trà My (2015) [27], đất của Bắc Trà My gồm nhiều nhóm bao gồm: nhóm đất mùn, đất vàng đỏ và đất phù sa.
– Nhóm đất mùn phân bố chủ yếu trên vùng núi cao thuộc xã Trà Giang, Trà Giáp, Trà Ka, Trà Giác, được hình thành trên nhiều loại đá mẹ khác nhau, với diện tích không lớn có vị trí gần các nguồn nước khe suối, nhân dân đã san phẳng làm ruộng bậc thang lúa nước.
– Nhóm đất vàng đỏ được phát sinh từ các loại đá phiến sa thạch, phiến thạch sét, phiến mica, gơnai…; tầng đất dày trên 1,5m, thành phần cơ giới trung bình và nặng, thường có kết cấu cục, hạt, lớp đất mặt khá tơi xốp, hàm lượng mùn khá, phân bố hầu hết các xã huyện Bắc Trà My.
– Nhóm đất phù sa hình thành do lắng đọng phù sa sông, nhưng do các sông ở Bắc Trà My đều có vận tốc dòng chảy lớn, nên lắng đọng được các sản phẩm thô, vì vậy đất có thành phần cơ giới nhẹ, hình thái phẫu diện tương đối đồng nhất về thành phần cơ giới và màu sắc. Một vài nơi cũng gặp hiện tượng phân hóa về thành phần cơ giới, nhưng không phải do rửa trôi mà do các lớp bồi tích ở từng đợt lũ khác nhau. Nhóm đất phù sa phân bố tập trung ở các xã Trà Núi, Trà Kót, Trà Giác và Trà Đốc…
1.4.1.3. Nhiệt độ và lượng mưa
Khí hậu huyện Bắc Trà My nói riêng và khí hậu tỉnh Quảng Nam nói chung nằm trong vùng khí hậu nhiệt đới gió mùa. Chế độ gió mùa cùng với đăc điểm địa lý, địa hình, đặc biệt sự tồn tại của dãy Trường Sơn đã quyết định đến loại hình và bản chất khí hậu toàn năm và cho mỗi mùa riêng biệt. Có hai mùa rõ rệt: mùa khô từ tháng 2 đến tháng 8, mùa mưa kéo dài từ tháng 9 đến tháng 1 năm sau.
Nhiệt độ không khí trung bình năm trên khu vực nghiên cứu thay đổi trong khoảng 19 – 28oC và phụ thuộc vào độ cao địa hình. Tại Trà My nhiệt độ không khí trung bình là 24,5oC. Mùa đông từ tháng 12 đến tháng 2 năm sau chịu ảnh hưởng của gió mùa Đông Bắc, nhiệt độ trung bình xuống dưới 210C; nhiệt độ thấp nhất đo vào tháng 2 năm 2015 là 18,30C. Mùa hè từ tháng 4 đền tháng 8 có gió mùa Tây Nam khô nóng kéo dài, nhiệt độ trung bình trên 26,50C.
– Lượng mưa trung bình năm tử 500 – 700mm, tập trung từ tháng 9 – 11. Từ tháng 6 đến tháng 9 thường xuyên có mưa giông nhiệt vào buổi chiều .
1.4.1.4. Chế độ gió và độ ẩm
Do cơ chế hoàn lưu và địa hình nên chế độ gió tại Bắc Trà My và vùng lân cận theo hai mùa rõ rệt, từ tháng 10 đến tháng 4 năm sau gió thịnh hành thiên về thành phần Bắc gồm các hướng: Đông Bắc, Tây Bắc, Bắc; từ tháng 5 đến tháng 9, gió thịnh hành thiên về thành phần Tây, hướng chính là Tây Nam, ngoài ra còn xen vào gió Đông, Đông Nam. Tốc độ gió trung bình năm từ 3,5 đến 4,5m/s, trong mùa mưa tốc độ gió lớn hơn mùa khô. Tần suất lặng gió từ 18 – 32%.
- Gió mùa Đông Bắc
Gió mùa Đông Bắc ảnh hưởng đến Bắc Trà My chia thành 2 giai đoạn: Giai đoạn đầu: từ tháng 9 đến tháng 12, giai đoạn này thường gây ra những đợt mưa vừa, mưa to và lạnh. Một số đợt xuất hiện cùng các nhiễu động nam biển Đông tạo nên những đợt mưa lớn, kéo dài gây nên lũ lụt lớn; Giai đoạn sau, từ tháng 1 đến tháng 4, lượng mưa giảm hơn. Gió mùa Đông Bắc xuất hiện từ tháng 12 đến tháng 3 thường gây mưa phùn, rét lạnh, trời âm u ảnh hưởng nhiều đến sản xuất và sức khoẻ của con người.
- Gió Tây Nam
Gió Tây Nam khô nóng thổi theo hướng tây nam, sau khi đã tiêu hao gần hết hơi nước do gây mưa ở phía Tây Trường Sơn và mang đến miền Trung Việt Nam một luồng khí nóng và độ ẩm thấp. Bắc Trà My ít chịu tác động của gió mùa Tây Nam do địa hình ở phía tây cao tạo thành sườn chắn gió. Nên các tháng mùa khô độ ẩm luôn cao hơn ở đồng bằng, dao động từ 80% đến 99%
1.4.1.5. Thủy văn
Sông ngòi là một thành phần khá đặc biệt của môi trường tự nhiên, đóng vai trò quan trọng trong việc tuần hoàn và trao đổi vật chất, năng lượng của khu vực.
Hầu hết các sông suối xuất phát từ các vùng núi cao, có sườn dốc đứng và được bao phủ bởi một lớp thảm thực vật tốt, nên về mùa mưa chúng chuyển tiếp vào một lượng lớn nước ngọt và theo một lượng chất hữu cơ màu mỡ.
Bắc Trà My là đầu nguồn quan trọng tạo nguồn nước cho sông Thu Bồn và một số sông ở cánh Bắc của tỉnh Quảng Nam. Do địa hình bị phân cắt mạnh nên hệ thống sông, suối tại đây khá phong phú. Bắc Trà My có hai sông lớn là sông Tranh và sông Trường, ngoài ra còn nhiều suối lớn nhỏ.
Chế độ dòng chảy chịu tác động của chế độ mưa, vì lượng mưa lớn nên dòng chảy khá dồi dào.
Trong mùa mưa, lũ thường xảy ra trong các tháng 9, 10 và 11 với cường suất lớn, gây sạt lở đất ở nhiều nơi. Hiện tượng lũ ống, lũ quét (xã Trà Bui, Trà Giác) thường xuyên xuất hiện gây nguy hiểm tính mạng và tài sản nhân dân.
Mùa kiệt từ tháng 12 đến tháng 4 năm sau. Trong mùa kiệt, lưu vực sông suối còn rất ít, mực nước sông xuống thấp gây khó khăn cho việc tưới tiêu đồng ruộng. Việc chặn dòng và xây dựng thủy điện sông Tranh 2 sẽ giải quyết lượng nước tưới cho 27.000 ha đất nông nghiệp. Nhưng hiện nay có hiện tượng động đất liên tục gây nhiều lo ngại cho người dân.
1.4.2. Tình hình kinh tế – xã hội
Huyện Bắc Trà My, tỉnh Quảng Nam là huyện miền núi cao, nhìn chung đời sống kinh tế, văn hóa xã hội trong vùng còn thấp, đặc biệt là bà con dân tộc ít người.
Theo Niên giám thống kê huyện Bắc Trà My, 2015 [27] cơ cấu kinh tế của huyện gồm các ngành nghề: trồng trọt, chăn nuôi, thương mại dịch vụ, khai thác lâm sản, đánh bắt nuôi trồng thủy sản. Quế là đặc sản của Bắc Trà My, được trồng nhiều ở các xã: Trà Giáp, Trà Ka, Trà Giác, Trà Bui.
Tổng diện tích đất canh tác toàn huyện khoảng 4.281 ha, trong đó diện tích cây lương thực có hạt là 2.447 ha. Tổng sản lượng lương thực có hạt đạt 7.716 tấn/năm. Tổng đàn gia súc đạt 31.778 con, đàn gia cầm đạt 103.336 con. Diện tích nuôi trồng thủy sản 32,5 ha, chủ yếu lòng hồ thủy điện Sông Tranh 2.
Nhu cầu trồng rừng của địa phương khá phát triển, nhiều hộ đã tập trung khai hoang, phát triển kinh tế rừng theo mô hình nông lâm kết hợp, hàng năm trên địa bàn huyện trồng khoảng 350 ha.
Vấn đề khai thác, mua bán, vận chuyển trái phép lâm sản vẫn còn diễn biến phức tạp. Việc phát rừng làm nương rẫy xảy ra nhiều nơi.
Theo điều tra thăm dò bước đầu, Bắc Trà My có nhiều khoáng sản: đồng, niken ở Trà Giáp; thiếc, kẽm ở Trà Giang; vàng ở Trà Giáp, Trà Bui; nước khoáng nóng ở Trà Bui. Tuy nhiên, do nhà nước chưa tổ chức khai thác và chế biến khoáng sản tập trung nên xảy ra hiện tượng khai thác bất hợp pháp của người dân địa phương.
Giao thông: tuyến đường Quốc lộ 40B từ TP. Tam Kỳ đi Nam Trà My qua địa phận huyện Bắc Trà My. Các tuyến đường qua xã Trà Dương đến Trà Kót, từ xã Trà Đốc đến Trà Bui đều được nhựa hóa, các tuyến đường khác vẫn còn đường đất. Nhiều cầu bê tông, cầu treo bắc qua sông Trường, sông Tranh và các suối lớn, thuận lợi cho việc đi lại của người dân.
- Dân số
Tổng dân số trong toàn huyện có 40.097 người, trong đó dân tộc Kinh 20.198 (50%), dân tộc Ca Dong 14.016 (34,12%), dân tộc Cor 4.403 (10,95%), dân tộc Mơ Nông 712 (1,7%), dân tộc Xê Đăng 116 (0,25%), còn lại các dân tộc thiểu số khác. Mỗi dân tộc hình thành các nhóm địa phương có ngôn ngữ, đặc trưng văn hóa, kĩ thuật canh tác riêng. Hiện nay ở nhiều xã lối canh tác truyền thống của người dân ảnh hưởng tiêu cực đến môi trường sinh thái.
Huyện Bắc Trà My có 12 xã và 1 thị trấn. Mật độ dân số là 48,28 người/km2, cao nhất là ở thị trấn Trà My, xã Trà Dương, xã Trà Đông, thấp nhất thuộc các xã Trà Kót và xã Trà Giác.
Bảng 1.1. Diện tích và mật độ dân số huyện Bắc Trà My,tỉnh Quảng Nam
| Đơn vị | Diện tích tự nhiên (km2) | Dân số trung bình | Mật độ dân số |
| Thị trấn Trà My | 20,45 | 7.668 | 374,94 |
| Trà Sơn | 43,15 | 2.996 | 69,43 |
| Trà Giang | 37,69 | 2.882 | 76,47 |
| Trà Dương | 31,36 | 3.622 | 115,5 |
| Trà Đông | 27,08 | 3.134 | 115,73 |
| Trà Nú | 55,24 | 1.295 | 24,44 |
| Trà Kót | 87,91 | 1.248 | 14,20 |
| Trà Tân | 27,05 | 1.906 | 70,44 |
| Trà Đốc | 53,24 | 2.274 | 42,71 |
| Trà Bui | 173,48 | 5.237 | 30,19 |
| Trà Giác | 150,42 | 2.324 | 15,45 |
| Trà Giáp | 64,69 | 2.713 | 41,93 |
| Trà Ka | 53,68 | 1.714 | 31,93 |
(Niên giám thống kê huyện Bắc Trà My năm 2015)
Số người trong độ tuổi lao động là 21.533 người, chiếm 52,4%. Tỷ lệ tăng dân số là 14,35%. Tỷ lệ sinh 19,1%, tỷ lệ chết 4,74%. Toàn huyện có 9.239 hộ gia đình, trung bình 710 hộ/xã. Số nhân khẩu bình quân 4,7 người/hộ gia đình. Số hộ nghèo 5.657 chiếm 61,23%.
- Y tế
Ngành y tế trong các năm gần đây chuyển biến tích cực, đã chú trọng phòng dịch các bệnh truyền nhiễm như sốt rét, sốt xuất huyết và các bệnh khác. Cơ sở hạ tầng bước đầu đã được nâng cao, lực lượng thầy thuốc bác sĩ được tăng cường đáp ứng tốt công tác phòng, ngừa, khám chữa bệnh và chăm sóc sức khỏe cho nhân dân.
Trên địa bàn huyện có 15 cơ sở y tế, trong đó có 1 Bệnh viện, 1 phòng khám đa khoa khu vực và 13 trạm xã y tế thị trấn.
- Giáo dục
Nhìn chung đời sống văn hóa bà con trong vùng còn thấp, đặc biệt các dân tộc ít người. Mạng lưới giáo dục trên toàn huyện đã được chú trọng, tuy nhiên tỷ lệ mù chữ vẫn còn nhiều. Toàn huyện có 29 trường học, trong đó có 13 trường tiểu học, 14 trường THCS, 02 trường THPT với tổng số 8.845 học sinh, 618 giáo viên [27].
ĐỐI TƯỢNG, THỜI GIAN, ĐỊA ĐIỂM VÀ PHƯƠNG PHÁP NGHIÊN CỨU
– Các loài giáp xác cỡ lớn (Malacostaca: Crustacea) ở nước tại sông Tranh, huyện Bắc Trà My, tỉnh Quảng Nam.
– Các yếu tố môi trường ảnh hưởng tới sự phân bố và thành phần loài của giáp xác cỡ lớn ở sông Tranh, huyện Bắc Trà My, tỉnh Quảng Nam.
2.2. THỜI GIAN VÀ ĐỊA ĐIỂM NGHIÊN CỨU
– Điều tra, khảo sát và thu mẫu được tiến hành từ tháng 2 đến tháng 10 năm 2016 qua 8 đợt, mỗi đợi kéo dài 2 đến 3 ngày (mỗi tháng tiến hành thu mẫu 1 lần). Cụ thể như sau:
Đợt 1: Từ ngày 25 – 26 tháng 3
Đợt 2: Từ ngày 24 – 26 tháng 4
Đợt 3: Từ ngày 8 – 9 tháng 5
Đợt 4: Từ ngày 20 – 21 tháng 6
Đợt 5: Từ ngày 30 – 31 tháng 7
Đợt 6: Từ ngày 27 – 29 tháng 8
Đợt 7: Từ ngày 15 – 16 tháng 9
Đợt 8: Từ ngày 2 – 4 tháng 10
Nghiên cứu được thực hiện tại 10 điểm thu mẫu thuộc sông Tranh, huyện Bắc Trà My, tỉnh Quảng Nam, các điểm thu mẫu được ký hiệu từ M1 đến M10.
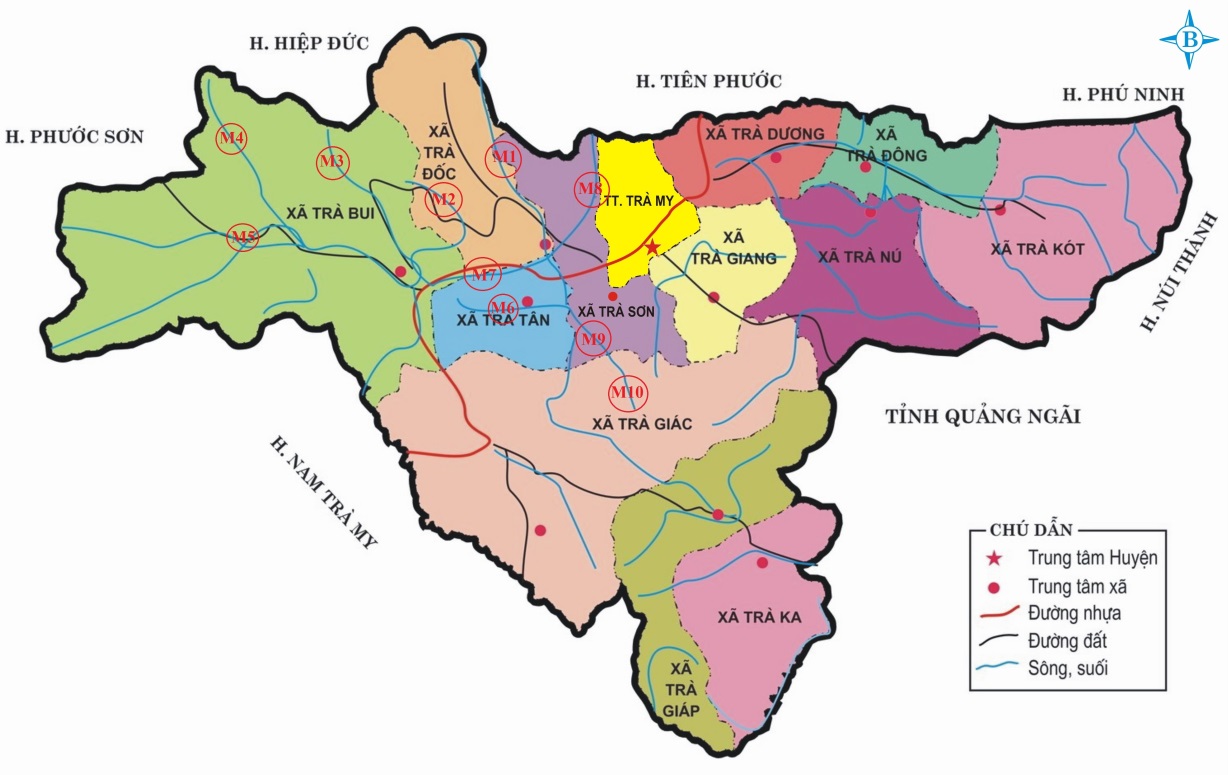
Hình 2.1. Sơ đồ các điểm thu mẫu tại sông Tranh, huyện Bắc Trà My, tỉnh Quảng Nam
Bảng 2.1. Địa điểm và vị trí thu mẫu
| STT | Vị trí thu mẫu | Ký hiệu | Ghi chú |
| 1 | Xã Trà Đốc | M1 | Hạ lưu |
| 2 | Xã Trà Đốc | M2 | Hạ lưu |
| 3 | Xã Trà Bui | M3 | Thượng lưu |
| 4 | Xã Trà Bui | M4 | Thượng lưu |
| 5 | Xã Trà Bui | M5 | Thượng lưu |
| 6 | Xã Trà Tân | M6 | Lòng hồ |
| 7 | Xã Trà Tân | M7 | Lòng hồ |
| 8 | Xã Trà Sơn | M8 | Lòng hồ |
| 9 | Xã Trà Sơn | M9 | Nhánh sông |
| 10 | Xã Trà Giác | M10 | Nhánh sông |
2.3. PHƯƠNG PHÁP NGHIÊN CỨU
2.3.1. Phương pháp thu thập số liệu, tài liệu
– Phương pháp nghiên cứu lý thuyết
Tiến hành thu thập các số liệu, tài liệu có liên quan đến nội dung nghiên cứu, bao gồm: điều kiện tự nhiên, khí hậu, thủy văn, kinh tế xã hội, bản đồ khu vực nghiên cứu, các đề tài nghiên cứu khoa học, sách, bài báo khoa học,…từ các cơ quan: Trung tâm Thông tin Thư viện ĐHKHTN ĐHQGHN, Phòng Nông nghiệp và Phát triển nông thôn huyện Bắc Trà My, Phòng Tài nguyên và Môi trường huyện Bắc Trà My, các cơ quan chuyên trách, mạng internet, chuyên gia.
– Phương pháp tham vấn cộng đồng
Phỏng vấn các hộ gia đình, người dân khai thác thủy sản ven sông Tranh, huyện Bắc Trà My, tỉnh Quảng Nam về sự có mặt của các loài Giáp xác cỡ lớn ở những địa điểm nghiên cứu, từ đó có định hướng thu thập mẫu vật đầy đủ hơn.
Điều tra về tên địa phương, khu vực và thời gian hay gặp hoặc gặp nhiều nhất.
Điều tra về biến động của loài.
Điều tra các ngư cụ khai thác, các hình thức và phương pháp khai thác.
Điều tra về năng suất sản lượng, mùa vụ, khả năng đánh bắt và giá trị sản phẩm.
2.3.2. Thu thập vật mẫu ngoài tự nhiên
Thu thập vật mẫu theo các phương pháp được sử dụng trong các nghiên cứu động vật không xương sống nước ngọt của các tác giả Đặng Ngọc Thanh (1974) [10], Nguyễn Xuân Quýnh (2004) [7], cụ thể như sau:
Thu mẫu bằng vợt ao (Pond net), vợt tay (hand net), khi thu thập vật mẫu, dùng vợt sục vào các đám cỏ, bụi cây nhỏ ven bờ, đối với một số loài sống ở nền đáy thủy vực, khi thu mẫu, dùng phương pháp đạp nước (Kick-sampling) ở nền sông có mực nước thấp hoặc nhấc các vật thể lên để tìm kiếm. Ngoài ra còn dùng thêm các phương pháp như: đèn pin soi vào buổi tối; dùng vó thả xuống nước sau đó bỏ thức ăn vào để dẫn dụ, kéo vó lên và bắt; phương pháp thu mẫu cộng đồng bằng cách đặt các lọ nhựa tại các gia đình đánh bắt thủy sản trên sông, mỗi điểm thu mẫu đặt 03 lọ ở 03 gia đình khác nhau, mỗi lọ có thể tích 1 lít, các lọ có ghi nhãn và bỏ sẵn cồn 90o trong lọ, đi vào trong chợ tại các khu vực thu mẫu để tìm hiểu và thu mẫu; Đi đánh bắt trực tiếp với người dân tại nơi mình thu mẫu bằng các phương pháp người dân dùng để đánh bắt gồm lưới, chài quét.
Trong quá trình thu thập vật mẫu, tiến hành khảo sát điều kiện tự nhiên tại thời điểm thu mẫu, ghi nhật ký thực địa, chụp ảnh các địa điểm lấy mẫu và đo 8 chỉ tiêu thủy lý hóa học của nước như: nhiệt độ nước, độ dẫn, pH, TDS: đo bằng máy đo đa chỉ tiêu Model: Hi 98129, Nhà sản xuất: Hanna, xuất xứ: Rumani, Độ phân giải: pH 0.01 pH, EC: 1 µS/cm, TDS: 1 ppm, Nhiệt độ: 0.1oC/ 0.1oF, độ chính xác (20oC/68oF), pH ±0.05pH, EC/TDS: ±2F.S, Nhiệt độ: ±0.5oC / ±1 oF, độ muối (đo bằng khúc xạ kế độ mặn AZ, Model: LM-HSR10ATC, Hãng sản xuất: AZ Instruments-Đài Loan); hàm lượng NH4+, DO và độ trong (đo bằng máy đo đa chỉ tiêu EcoSense 9500 của Phòng Cảnh sát Môi trường Công an tỉnh Quảng Nam).
2.2.3. Phân tích vật mẫu trong phòng thí nghiệm
Tất cả các vật mẫu sau khi thu thập được ngoài thực địa được định hình, bảo quản, vận chuyển và phân tích tại Phòng thí nghiệm của Khoa Sinh, Trường Đại học Quảng Nam.
Việc định loại vật mẫu được tiến hành dựa trên các tài liệu định loại đã được công bố ở trong và ngoài nước [6], [11], [13], [17], [20], sử dụng các trang thiết bị chuyên dùng (kính lúp Stemi DV4 của Đức, độ phóng đại từ 8-64 lần), khay, ghim, thước đo.
Các số liệu được tính toán, xử lý và thể hiện qua bảng biểu, sơ đồ, đồ thị, sử dụng phần mềm Microsoft Excel 2010 và phần mềm Primer 6.
Chỉ số Shannon-Wiener: được tính bằng cách lấy số lượng cá thể của một đơn vị phân loại chia cho tổng số cá thể sinh vật trong mẫu, sau đó nhân với logarit của tỷ số đó. Công thức để tính chỉ số này là:
Trong đó:
H’: Chỉ số đa dạng Shannon-Wiener
s: Số lượng loài
pi = ni/N: Tỷ lệ số lượng cá thể của loài i
so với số lượng cá thể trong toàn bộ mẫu
ni: Số lượng cá thể loài i
N: Số lượng cá thể trong toàn mẫu
Từ kết quả tính toán, đưa ra nhận xét về mức độ đa dạng theo các mức sau đây:
| Nếu chỉ số đa dạng >3: | ĐDSH tốt và rất tốt | ||
| 1 – 3: | ĐDSH khá | ||
| Trong đó: | |||
| 2-3: Trung bình khá | |||
| 1-2: Trung bình kém | |||
| <1: | ĐDSH kém và rất kém | ||
2.2.4.2. Phân tích tính tương đồng (Similarity)
Sử dụng công thức tính tương đồng của Bray-Curtis:
Trong đó:
Sjk: Hệ số tương đồng của hai mẫu j và k (theo %)
yij: Số lượng cá thể loài i có trong mẫu j
yik: Số lượng cá thể loài i có trong mẫu k
p: Số loài có trong mẫu j và k
Giá trị Sjk nằm trong khoảng 0-100%, Sjk càng lớn, thì tính tương đồng của hai mẫu càng cao.
Phân tích này được sử dụng để tính hệ số tương đồng cho dữ liệu sinh học. Có thể biểu diễn mối quan hệ tương đồng bằng 2 cách:
– Biểu diễn theo nhóm (clustering), các điểm thu mẫu được biểu diễn dưới dạng các nhánh cây, nhánh cây càng gần nhau thì mức độ tương đồng càng cao.
– Biểu diễn theo không gian 2 chiều (MDS-Metric Dimentional Scaling), các điểm gần nhau sẽ có tính tương đồng cao hơn so với những điểm cách xa nhau. Trong biểu diễn MDS, giá trị của hàm Stress càng nhỏ thì vị trí các điểm được thể hiện trên không gian 2 chiều càng phù hợp với hệ số tương đồng giữa chúng. Giá trị Stress < 0,05: rất tốt (excellent); Stress < 0,1: tốt (good); Stress < 0,2: chấp nhận được (potential useful) và Stress > 0,3: vị trí giữa hai điểm được xếp ngẫu nhiên (arbitrarily placed points in 2 dimensional space).
2.2.4.3. Phân tích BEST (BIO-ENV)
BIO-ENV dùng để đánh giá mối tương quan giữa quần xã sinh vật với các yếu tố môi trường. BIO-ENV gồm 2 ma trận: ma trận tương đồng về dữ liệu sinh học (sử dụng sự tương đồng chỉ số Bray-Curtis) và ma trận của các yếu tố môi trường (sử dụng khoảng cách Euclide-Euclide distance). Hệ số tương quan Rho (ρ) được tính dựa trên 2 ma trận thông qua phạm vi tương quan Spearman. Kết quả phân tích BEST (BIO-ENV) sẽ xác định và xếp loại tập hợp con của biến môi trường tương ứng với thành phần loài sinh vật của mẫu theo hệ số tương quan Rho và mức ý nghĩa-giá trị ρ.
KẾT QUẢ NGHIÊN CỨU VÀ THẢO LUẬN
3.1. ĐẶC ĐIỂM THỦY LÝ, HÓA CỦA KHU VỰC NGHIÊN CỨU
Phân tích, đánh giá chất lượng môi trường nước sông Tranh dựa trên các kết quả phân tích mẫu nước qua các đợt thu mẫu. Chất lượng nước nhìn chung có sự tác động, ảnh hưởng chủ yếu ở khu vực lòng hồ và sau cửa xả về hạ du còn phần thượng nguồn không ảnh hưởng nhiều do vẫn đảm bảo dòng chảy tự nhiên. Các chỉ tiêu chất lượng nước được sử dụng đánh giá: PH, to, DO, TDS, AC và NH4+.
Kết quả đo và kiểm tra thực tế chất lượng nước trung bình tại các vị trí thu mẫu trên sông Tranh:
Bảng 3.1. Chất lượng nước sông Tranh
| Chỉ tiêu | Thượng nguồn | Lòng hồ | Hạ du | Kết quả 2003 | QCVN 38-2011/ nước mặt | |||
| Mùa khô | Mùa mưa | Mùa khô | Mùa mưa | Mùa khô | Mùa mưa | |||
| pH | 7,8 | 7,12 | 6,58 | 6,72 | 6,8 | 7,5 | 7,09 | 6,5 – 8,5 |
| Nhiệt độ (oC) | 28 | 26,5 | 28,6 | 27,5 | 29 | 27,8 | – | – |
| Độ dẫn (µS/cm) | 102 | 92 | 107,5 | 98 | 105 | 93,2 | – | – |
| Độ đục (NTU) | 28,5 | 32,6 | 32 | 44,2 | 34 | 48,6 | – | – |
| Do (mg/l) | 6,8 | 6,8 | 5,0 | 5,0 | 5,2 | 5,2 | 6,11 | >= 4 |
| TDS (mg/l) | 37 | 40 | 30 | 48 | 29 | 25 | – | 1000 |
| AC (mg/l) | 73 | 75 | 60 | 97 | 58 | 51 | 53,6 | |
| NH4+ (mg/l) | 0,08 | 0,05 | 0,02 | 0,1 | 0,03 | 0,09 | – | 1 |
| Độ mặn | 0 | 0 | 0 | 0 | 0 | 0 | – | – |
Ghi chú: QCVN 38:2011/BTNMT: Quy chuẩn kỹ thuật Quốc gia về chất lượng nước mặt bảo vệ đời sống thủy sinh [1]
“-”: Không xác định.
– Nhiệt độ: tại các điểm thu mẫu có nhiệt độ không bằng nhau là do có sự khác nhau về độ che phủ thực vật, mực nước, địa hình. Ở khu vực thượng lưu có nhiệt độ thấp là do có độ che phủ thực vật cao hơn, kết hợp với đồi núi cao nên có nhiều nước ngầm từ đất chảy ra. Khu vực lòng hồ và vùng hạ lưu sông Tranh có nhiệt độ cao thường có độ che phủ thực vật ít, địa hình ít đồi núi nên lượng nước ngầm thường ít hơn. Nhiệt độ chênh lệch cũng có thể do khác nhau về dòng chảy và mực nước trên sông, nếu chỗ nào có mực nước cao hơn thì nhiệt độ nước sẽ thấp hơn.
Theo mùa thì mùa khô có nhiệt độ trung bình cao hơn mùa mưa. Sự chênh lệch này là do mùa khô có nền nhiệt cao hơn mùa mưa, nhiệt độ cao nhất trong vùng là tháng 6. Tuy nhiên, sự chênh lệch nhiệt độ giữa các vùng và các mùa trong năm ở sông Tranh cũng không lớn lắm. Nhìn chung, sự biến động nhiệt độ trong vùng cả hai mùa đều nằm trong giới hạn phát triển bình thường của thủy sinh vật.
– pH: Nhìn chung, pH ở mức trung tính và ít biến thiên theo không gian và thời gian. Các giá trị pH đo được tại các vị trí thu mẫu và giữa hai mùa đều nằm trong giới hạn cho phép về chất lượng nước mặt bảo vệ đời sống thủy sinh quy định tại QCVN 38:2011/BTNMT.
– Độ đục (NTU): Độ đục càng về cuối sông thì độ đục càng cao, nguyên nhân do về cuối sông có nhiều suối đổ vào mang thêm phù sa làm cho độ đục tăng lên. Độ đục mùa mưa đo được cao hơn mùa khô, nguyên nhân là do mùa mưa nguồn nước mưa chảy về mang nhiều phù sa nên làm cho độ đục tăng.
– Độ dẫn: độ dẫn tương đối giống nhau ở các điểm thu mẫu, các điểm năm trong lòng hồ thủy điện sông Tranh có độ dẫn cao hơn. Theo thực tế tại hiện trường thì nước ở các địa điểm thu mẫu này có màu đục hơn, qua phỏng vấn, hơn 92% người dân sống tại đây cho biết thì nước sông ở khu vực này chịu sự tác động của nước thải từ việc nuôi thủy sản trong khu vực lòng hồ. Vì vậy, đây cũng có thể là nguyên nhân dẫn đến tại hai địa điểm này có độ dẫn cao hơn. Xét theo mùa, độ dẫn đo được tại các điểm thu mẫu vào mùa mưa thấp hơn mùa khô.
– Hàm lượng ôxy hòa tan (DO): biểu thị cho độ phồn thịnh chung của chất lượng nước, cho thấy khi có hồ chứa thì chỉ số DO giảm nhiều và thay đổi qua các mùa khác nhau chứng tỏ chất lượng nước đã giảm. Phần phía trên thượng nguồn, các chỉ tiêu chất lượng nước tương đương với chất lượng nước sông Tranh trước khi xây đập, chỉ số DO vẫn trên 6,5mg/l do các nhánh sông này vẫn đảm bảo dòng chảy tự nhiên về đập, không bị cản trở hay tác động lên những đoạn sông này.
Hồ chứa đi vào hoạt động đã nhấn chìm một diện tích đất đai trong nước và kéo theo hàng loạt các vật thể tồn tại trên nó tạo ra một phần nguồn hữu cơ làm tiêu hao hàm luợng ôxy sẵn. Ðây là các thành phần hữu cơ nên khi các thành phần này phân hủy thì đã tiêu thụ ôxy có trong hồ và gây thiếu hụt hàm luợng ôxy trong nuớc ảnh huởng đến các sinh vật thủy sinh. Bằng chứng là hàm lượng ôxy hòa tan trong hồ giảm còn chỉ 5 – 5,5mg/l, trong khi trước khi xây dựng đập trung bình đạt 6,11 mg/l.
Chất lượng nước phía sau của nhà máy về hạ lưu sẽ phụ thuộc nhiều vào chất lượng nước phía trên hồ và các lưu vực khác phía dưới hạ lưu đổ vào. Về mùa kiệt chất lượng nước đoạn sông này tương đương với phía trên hồ, do thời gian này nguồn nước chính là từ hồ xả xuống còn các phụ lưu khác đều thiếu nước.
– NH4+: Tại các điểm thu mẫu có giá trị tương đối ổn định, ít biến động theo không gian và thời gian. Kết quả đo NH4+ tại các điểm thu mẫu nằm trong giới hạn cho phép về chất lượng nước mặt bảo vệ đời sống thủy sinh quy định tại QCVN 38:2011 BTNMT.
– Độ mặn: Tại tất cả các điểm thu mẫu đều có độ mặn bằng 0.
Đối chiếu kết quả quan trắc, phân tích với kết quả đo được năm 2003 và QCVN 38-2011 (Bảng 3.1) cho thấy các chỉ tiêu đều nằm trong giới hạn cho phép, chất lượng nước suy giảm so với thời gian chưa có thủy điện. Nhưng các chỉ tiêu này vẫn nằm trong giới hạn cho phép đối với tiêu chuẩn nước ngọt bảo vệ đời sống thủy sinh (QCVN 38:2011 BTNMT).
3.2. THÀNH PHẦN LOÀI GIÁP XÁC CỠ LỚN TẠI KHU VỰC NGHIÊN CỨU
Kết quả thu thập và phân tích mẫu vật tại 10 điểm thu mẫu trong thời gian nghiên cứu đã thu được 21 loài thuộc 6 giống và 4 họ (Atyidae, Palaemonidae, Potamidae và Parathelphusidae). Kết quả được thể hiện tại bảng 3.2
Bảng 3.2. Thành phần loài Giáp xác cỡ lớn đã gặp tại các điểm thu mẫu
| S TT | Taxon | Địa điểm và đợt thu mẫu | |||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
| M1 | M2 | M3 | M4 | M5 | M6 | M7 | M8 | M9 | M10 | ||||||||||||
| K | M | K | M | K | M | K | M | K | M | K | M | K | M | K | M | K | M | K | M | ||
| I | Atyidae (Họ tôm) | ||||||||||||||||||||
| 1 | Caridina acuticaudata Dang, 1975 | x | x | x | x | x | x | x | x | x | x | x | x | x | x | ||||||
| 2 | Caridina serrata serrata Stimpson, 1860 | x | x | x | x | x | x | x | |||||||||||||
| 3 | Caridina subnilotica Dang, 1975 | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x | ||||
| 4 | Caridina flavilineata Dang, 1975 | x | x | x | x | ||||||||||||||||
| 5 | Caridina sp. | x | x | x | x | x | x | x | x | x | x | x | x | ||||||||
| II | Palaemonidae (Họ tôm gai) | ||||||||||||||||||||
| 6 | Macrobrachium dalatense Xuan Nguyen Van, 2003 | x | x | x | x | x | |||||||||||||||
| 7 | Macrobrachium pilimanus (De Man, 1879) | x | x | x | x | x | |||||||||||||||
| 8 | Macrobrachium vietnamense Dang, 1972 | x | x | x | x | x | x | x | x | x | x | x | x | ||||||||
| 9 | Macrobrachium nipponense (De Haan, 1849) | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x |
| 10 | Macrobrachium suongae Nguyên, 2003 | x | x | x | x | x | x | x | x | x | x | ||||||||||
| 11 | Macrobrachium lanchesteri (De Man, 1911) | x | x | x | x | x | x | x | x | x | x | x | x | x | x | ||||||
| 12 | Macrobrachium secamanense Dang, 1998 | x | x | x | x | x | x | x | x | x | x | x | x | ||||||||
| 13 | Macrobrachium hainanense Parisi, 1919 | x | x | x | x | x | x | x | x | x | x | x | x | ||||||||
| 14 | Macrobrachium mieni Dang, 1975 | x | x | x | x | x | x | x | x | x | x | x | x | ||||||||
| 15 | Macrobrachium sp. | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x |
| 16 | Macrobrachium formosense Bate, 1868 | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x | |||||
| 17 | Palaemon serrifer (Stimpson, 1860) | x | x | x | |||||||||||||||||
| III | Potamidae (Họ cua núi) | ||||||||||||||||||||
| 18 | Potamon potamios (Olivier, 1804) | x | x | x | x | x | x | x | x | x | x | ||||||||||
| IV | Parathelphusidae (Họ cua đồng) | ||||||||||||||||||||
| 19 | Esanthelphusa dugasti (Rathbun, 1902) | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x |
| 20 | Somanniathelphusa dugasti (Rathbun, 1902) | x | x | x | x | x | x | x | x | x | x | x | x | x | x | ||||||
| 21 | Somanniathelphusa sinensis sinensis Dang, 1975 | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x | x |
Số lượng loài và giống cụ thể của từng họ được trình bày trong bảng 3.3
Bảng 3.3. Cấu trúc thành phần loài Giáp xác cỡ lớn ở nước tại khu vực nghiên cứu
| Họ | Giống | Loài | ||
| Số lượng | Tỷ lệ (%) | Số lượng | Tỷ lệ (%) | |
| Atyidae | 1 | 16,67 | 5 | 23,81 |
| Palaemonidae | 2 | 33,33 | 12 | 57,14 |
| Potamidae | 1 | 16,67 | 1 | 4,76 |
| Parathelphusidae | 2 | 33,33 | 3 | 14,29 |
| Tổng | 6 | 100 | 21 | 100 |
Kết quả nghiên cứu cho thấy, số lượng giống giữa các họ là tương đối đều nhau nhưng số lượng loài thu được tại khu vực nghiên cứu giữa các họ khác nhau rõ rệt. Trong 4 họ Giáp xác cỡ lớn thì họ Palaemonidae có số lượng loài nhiều nhất với 12 loài thuộc 2 giống (chiếm 57,14% trong tổng số loài), tiếp theo là họ Atyidae thu được 5 loài thuộc 1 giống (chiếm 23,81% trong tổng số loài), họ Parathelphusidae thu được 3 loài thuộc 2 giống (chiếm 14,29 % trong tổng số loài), cuối cùng là họ Potamidae chỉ thu được 1 loài thuộc 1 giống (chiếm 4,76 % trong tổng số loài).
Chi tiết về cấu trúc thành phần loài Giáp xác cỡ lớn ở nước tại khu vực nghiên cứu thể hiện ở hình 3.1
Hình 3.1. Tỷ lệ % loài theo họ tại khu vực nghiên cứu
Để làm rõ hơn tính đa dạng loài của Giáp xác cỡ lớn ở nước tại khu vực nghiên cứu, chúng tôi tiến hành phân tích kết quả thành phần loài của từng họ.
3.2.1. Thành phần loài họ tôm gai (Palaemonidae)
Trong hộ tôm gai giống Macrobrachium có số lượng loài cao nhất với 11 loài chiếm 91,67%, tiếp theo là giống Paleamon có 1 loài chiếm 8,3%
Trong đó có các loài phân bố rộng trong vùng phía đông châu Á, như: Macrobrachium nipponense và M. hainanense. Các loài chỉ phân bố giới hạn trong khu vực phía nam vùng phía đông châu Á có giới hạn cao nhất là Việt Nam, như: M. pilimanus, M. lanchesteri. Các loài cho tới nay mới chỉ thấy có ở Việt Nam, tập trung ở các thuỷ vực vùng núi, như: M. mieni, M. suongae và M. dalatense.
Trong tổng số 12 loài thì có M. nipponense, M. sp. phân bố rộng nhất, có mặt ở tất cả 10/10 điểm thu mẫu; tiếp theo là , M. formosense phân bố ở 8/10 điểm thu mẫu; M.lanchesteri phân bố ở 7/10 điểm thu mẫu; Loài M. mirabile, M. secamanense, M.hainanense và M.mieni phân bố tại6 /10 điểm thu mẫu; M.dalatense, M. pilimanus và M.suongae phân bố tại 5/10 điểm thu mẫu; cuối cùng, phân bố hẹp nhất là Paleamon serrifer chỉ phân bố tại 3/10 điểm thu mẫu tại khu vực nghiên cứu
Xét theo mùa, có 8 loài gặp ở cả hai mùa: M. mirabile, M. nipponense, M. lanchesteri, M. secamanense, M. hainanense, M. mieni, M. sp. và M. formosense. Đây là những loài phổ biến ở khu vực nghiên cứu. Còn lại 5 loài chỉ gặp ở một mùa, trong đó có 2 loài gặp vào mùa khô, gồm: M. dalatense, Palaemon serrifer và 1 loài gặp vào mùa mưa là M. pilimanus.
3.2.2. Thành phần loài họ tôm (Atyidae)
Họ tôm (Atyidae) có 3 loài được mô tả tại Việt Nam: Caridina acuticaudata, C. subnilotica, C. flavilineata. Trong đó phân bố rộng nhất là loài C.subnilotica có mặt ở 8/10 điểm thu mẫu; tiếp theo là loài C. acuticaudata, C.serrata serrata phân bố ở 7/10 điểm thu mẫu; loài C. flavilineata phân bố ở 6/10 điểm thu mẫuvà phân bố hẹp nhất là loài Caridina sp. chỉ phân bố tại 5/10 điểm thu mẫu.
Xét theo mùa, có 2 loài gặp ở cả hai mùa gồm, C. acuticaudata và Caridina sp., còn lại 3 loài chỉ gặp ở mùa khô, gồm: C. serrata serrata, C. subnilotica và C. flavilineata.
3.2.3. Thành phần loài họ cua đồng (Parathelphusidae)
Họ cua đồng (Parathelphusidae) có giống Somanniathelphusa với 2 loài và goppmhs Esanthelphusa với 1 loài. Họ này chủ yếu sinh sống trong khu vực Đông Nam Á, chúng sinh sống trong các con sông, ao, hồ và ruộng lúa.
Trong tổng số 3 loài thì có các loài và phân loài phân bố rộng nhất là Esanthelphusa dugasti và Somannithephusa siensis siensis có mặt ở tất cả 10/10 điểm thu mẫu; Somannithephusa dugasti phân bố hẹp hơn, chỉ có mặt ở 7/10 điểm thu mẫu
Xét theo mùa thì các loài thuộc họ Parathelphusidae đều có mặt ở tất cả các lần thu mẫu trong 2 mùa.
3.2.4. Thành phần loài họ cua núi (Potamidae)
Họ cua núi (Potamidae) có số loài ít nhất trong tất cả các họ, chỉ với 1 loài, thuộc 1 giống (chiếm 4,76% tổng số loài thu được tại khu vực nghiên cứu) phân bố tại 5 điểm thu mẫu ở 2 mùa.
3.3. BIẾN ĐỘNG THÀNH PHẦN LOÀI VÀ SỐ LƯỢNG CÁC THỂ CỦA GIÁP XÁC CỠ LỚN Ở NƯỚC NGỌT THEO MÙA
3.3.1. Biến động thành phần loài Giáp xác cỡ lớn ở nước tại sông Tranh
Vào mùa khô, tại các điểm thu mẫu đã thu được 21 loài Giáp xác cỡ lớn thuộc 7 giống và 4 họ. Để làm rõ sự khác biệt giữa các điểm nghiên cứu, chúng tôi tiến hành phân tích và so sánh số lượng, thành phần loài Giáp xác cỡ lớn thu được tại mỗi điểm. Số lượng và thành phần loài Giáp xác cỡ lớn theo các điểm thu mẫu được thể hiện chi tiết trong bảng 3.5, hình 3.2, phụ lục 2.
Bảng 3.4. Số loài Giáp xác cỡ lớn thu được của các họ
tại các điểm thu mẫu vào mùa khô
| Điểm thu mẫu | Atyidae | Palaemonidae | Potamidae | Parathelphusidae | Tổng |
| M1 | 3 | 8 | 1 | 3 | 15 |
| M2 | 3 | 7 | 0 | 3 | 13 |
| M3 | 5 | 10 | 1 | 3 | 19 |
| M4 | 5 | 11 | 1 | 3 | 20 |
| M5 | 3 | 10 | 1 | 3 | 17 |
| M6 | 2 | 3 | 0 | 2 | 7 |
| M7 | 2 | 4 | 0 | 2 | 8 |
| M8 | 1 | 4 | 0 | 3 | 8 |
| M9 | 3 | 8 | 1 | 2 | 14 |
| M10 | 5 | 8 | 0 | 3 | 16 |
Hình 3.2. Số loài Giáp xác cỡ lớn thu được của các họ
tại các điểm thu mẫu vào mùa khô
Qua kết quả ở bảng 3.4 hình 3.2 và phụ lục 2 cho thấy: trong khu vực nghiên cứu họ Palaemonidae có thành phần loài chiếm ưu thế nhất tại tất cả các điểm thu mẫu, có số lượng loài tăng ở vùng thượng lưu của khu vực nghiên cứu, tiếp theo là họ Atyidae có số lượng loài lớn và phân bố ở tất cả các điểm thu mẫu đặc biệt là phân bố rộng tại các điểm M3, M4, M10 (vùng thượng lưu và 1 nhánh của sống Tranh), kế tiếp là họ Parathelphusidae có thành phần loài phân bố tại tất cả các điểm thu mẫu. Họ có số lượng loài ít nhất là họ Potamidae chỉ có thành phần loài phân bố tại 5/10 điểm thu mẫu và hầu như không xuất hiện ở khu vực lòng hồ tại tất cả các đợt thu mẫu. Như vậy, tại các điểm thu mẫu có cấu trúc thành phần loài không giống nhau, cụ thể như sau:
Các điểm M1, M3, M4, M5 và M9 có cấu trúc thành phần loài đa dạng tương đương nhau, có số loài cao nhất và cũng tập trung nhiều họ nhất ở khu vực này, cụ thể: điểm M3, M4 và M5 có 19 loài, thuộc 4 giống và 4 họ. Điều này được giải thích như sau: tại các điểm trên có điều kiện sinh thái thuận lợi cho sự phát triển của các loài Giáp xác cỡ lớn như: tại khu vực này mực nước trên sông luôn giữ ở mức tương đối cao, dòng chảy nhẹ không làm xáo trộn đáy sông ảnh hưởng đến nơi làm tổ của các loài Giáp xác cỡ lớn; hai bên sông có độ che phủ tương đối tốt bởi hệ thống rừng đầu nguồn, có ít hộ gia đình sinh sống hai bên sông, chủ yếu là người dân tộc thiểu số nên hạn chế được sự tác động của con người lên đời sống của các loài Giáp xác; cũng tại khu vực này có nhiều suối đổ về mang theo nhiều mùn bã hữu cơ là nguồn thức ăn cho Giáp xác cỡ lớn; đồng thời, điểm M9 là điểm do 2 nhánh của sông Tranh từ Trà Giang và Trà Sơn chạy về tạo thành nên thành phần loài ở đây cũng phong phú hơn. Bên cạnh đó, kết quả đo các chỉ số môi trường thì tại đây cũng đã cho thấy các điểm này có điều kiện môi trường ở mức thuận lợi cho sự phát triển của Giáp xác cỡ lớn. Từ những lý do trên tạo nên sự đa dạng các loài Giáp xác cỡ lớn tại đây cao và tương đối đồng đều nhau.
Nhưng, tại điểm thu mẫu M6, M7, M8 có thành phần và số lượng các loài thấp là do đây là khu vực lòng hồ, sau khi xây dựng đập, mực nước hồ chứa sẽ dâng cao, dòng chảy ở hạ lưu sau nhà máy thì phụ thuộc vào công xuất hoạt động của nhà máy. Việc tích nước hồ đã thay đổi sâu sắc chế độ dòng chảy của sông Tranh. Trên sông Tranh đã hình thành hai chế độ dòng chảy khác biệt ở thượng lưu và hạ lưu mà ranh giới của chúng là đập hồ chứa. Dòng chảy trên các đoạn sông không ổn định, thất thường ngay cả trong mùa cạn. Thời gian tập trung dòng chảy ngắn lại, thay đổi theo từng đoạn sông không theo quy luật rõ rệt. Dòng chảy không ổn định đã phá hủy đới ven bờ, nơi ở và sinh sản một số loài giáp xác đồng thời cũng làm cho việc tìm kiếm thức ăn của chúng trở nên khó khăn hơn và chính điều này đã làm cho số lượng cũng như thành phần loài giáp xác ở khu vực này giảm đi một cách đáng kể.
3.3.1.2. Mùa mưa
Vào mùa mưa, tại các điểm thu mẫu đã thu được 17 loài Giáp xác cỡ lớn thuộc 7 giống và 4 họ. Số lượng thành phần loài Giáp xác cỡ lớn của các họ thu được tại các điểm thu mẫu được thể hiện chi tiết ở bảng 3.6, hình 3.3 và phụ lục 2.3
Bảng 3.5. Số loài Giáp xác cỡ lớn thu được của các họ
tại các điểm thu mẫu vào mùa mưa
| Điểm thu mẫu | Atyidae | Palaemonidae | Potamidae | Parathelphusidae | Tổng |
| M1 | 2 | 8 | 1 | 3 | 14 |
| M2 | 3 | 8 | 0 | 3 | 14 |
| M3 | 3 | 8 | 1 | 3 | 15 |
| M4 | 3 | 9 | 1 | 3 | 16 |
| M5 | 3 | 10 | 1 | 3 | 17 |
| M6 | 1 | 3 | 0 | 2 | 6 |
| M7 | 1 | 4 | 0 | 2 | 7 |
| M8 | 0 | 5 | 0 | 3 | 8 |
| M9 | 2 | 7 | 1 | 2 | 12 |
| M10 | 3 | 8 | 0 | 3 | 14 |
Qua bảng 3.5 và hình 3.3 ta thấy: vào mùa mưa họ có thành phần loài ưu thế nhất trong khu vực nghiên cứu là Palaemonidae với số lượng loài lớn, phân bố rộng tại 10/10 điểm thu mẫu, tiếp theo là họ Parathelphusidae cũng có mặt tại 10/10 điểm thu mẫu nhưng số lượng loài xuất hiện ít hơn của họ Plaemonidae, kế tiếp là họ Atyidae có mặt tại 9/10 điểm thu mẫu. Ít nhất là Potamidae có số lượng loài ít và chỉ có mặt tại 5/10 điểm thu mẫu và có số lượng nhiều tại khu vực thượng lưu.
Hình 3.3. Số loài Giáp xác cỡ lớn thu được của các họ
tại các điểm thu mẫu vào mùa mưa
So sánh các điểm thu mẫu với nhau ta thấy: vào mùa mưa cấu trúc thành phần loài Giáp xác cỡ lớn tại các điểm thu mẫu vẫn có sự chênh lệch rất lớn giữa các khu vực thượng lưu, lòng hồ và hạ lưu của sông Tranh và khu vực thượng lưu vẫn chiếm ưu thế về số lượng và thành phần loài, cụ thể như ở điểm thu mẫu M5 (vùng thượng lưu) có số lượng loài cao nhất với 17 loài, các điểm M1, M2, M8 và M10 thì số lượng loài tập trung và được bắt gặp trong mùa mưa tương đối đồng đều nhau từ 10 -11 loài, trong khi đó tại điểm M7 (khu vực lòng hồ) chỉ xuất hiện duy nhất 1 loài, M6 và M8 thì cũng chỉ có 2 loài xuất hiện. Tuy nhiên, số lượng loài giữa các điểm thu mẫu có sự chênh lệch không quá lớn. Nguyên nhân có thể được giải thích như sau: vào mùa mưa nước trên sông Tranh, đặc biệt là khu vực thượng lưu chảy mạnh, nước lũ dâng cao sau những trận mưa đầu mùa và thường gây ra lũ và cùng với việc xả lũ của thủy điện sông Tranh cho nên các loài Giáp xác cỡ lớn tại đây di cư theo dòng nước hoặc bị cuốn trôi theo nước lũ từ điểm này tới điểm khác làm cho các loài tại các điểm thu mẫu có sự hoà lẫn vào nhau hoặc có thể có một số loài từ nơi khác di cư đến làm giảm sự chênh lệch về thành phần loài tại các điểm. Mặt khác, vào mùa mưa nước trên sông Tranh chảy mạnh, mực nước trên sông cao, sự chênh lệch về môi trường sống tại các điểm thu mẫu không đáng kể cho nên sự phân bố các loài tại các điểm thu mẫu tương đối đồng đều. Tuy nhiên, tại khu vực lòng hồ có số lượng và thành phần loài giảm mạnh là do việc xây dựng hồ chứa đã chắn và làm thay đổi dòng chảy, khu vực lòng hồ sâu, mực nước đứng lớn nên dẫn tới có rất ít các loài giáp xác sống ở khu vực này.
3.3.1.3. Sự biến động thành phần loài Giáp xác cỡ lớn tại các điểm thu mẫu giữa hai mùa
Sự khác nhau về thành phần loài Giáp xác cỡ lớn tại các điểm thu mẫu giữa hai mùa được thể hiện tại bảng 3.7, hình 3.4 và phụ lục 2.
Bảng 3.6. Số lượng loài Giáp xác cỡ lớn tại các điểm thu mẫu giữa hai mùa
| STT | Điểm thu mẫu | Số loài | |
| Mùa khô | Mùa mưa | ||
| 1 | M1 | 15 | 14 |
| 2 | M2 | 13 | 14 |
| 3 | M3 | 19 | 15 |
| 4 | M4 | 20 | 16 |
| 5 | M5 | 17 | 17 |
| 6 | M6 | 7 | 6 |
| 7 | M7 | 8 | 7 |
| 8 | M8 | 8 | 8 |
| 9 | M9 | 14 | 12 |
| 10 | M10 | 16 | 14 |
So sánh hai mùa với nhau ta có: số lượng các loài Giáp xác cỡ lớn thu được tại các điểm thu mẫu giữa hai mùa có sự chênh lệch rõ rệt ở một số điểm nhất là khu vực thượng lưu, tuy nhiên tại khu vực lòng hồ thì sự biến động giữa hai mùa hầu như rất nhỏ. Vào mùa mưa số lượng loài Giáp xác cỡ lớn tại đây thu được ít hơn mùa khô, cũng qua hình 3.4 ta thấy sự biến động thành phần loài vào mùa khô giữa các điểm cao hơn vào mùa mưa. Điều này được giải thích như sau: Vào mùa khô, môi trường sống ổn định, đáy sông không bị xáo trộn tạo điều kiện thuận lợi cho việc làm tổ của các loài Giáp xác, cũng vào mùa khô có nhiều loài thực vật thủy sinh phát triển tạo nguồn thức ăn phong phú cho nên các loài Giáp xác cỡ lớn sinh sản và phát triển nhiều hơn; vào mùa khô, nước sông chảy nhỏ tạo nên sự khác biệt đáng kể giữa các điểm thu mẫu về môi trường sống cho nên hình thành những khu phân bố riêng cho từng khu vực, đây là nguyên nhân dẫn đến sự khác biệt lớn hơn về thành phần loài giữa các điểm thu mẫu với nhau vào mùa khô; vào mùa mưa, dòng nước sông lớn gây xáo trộn môi trường sống, làm mất nơi làm tổ của Giáp xác cỡ lớn tại đây, có nhiều loài Giáp xác cỡ lớn có thể đã di cư theo dòng nước hoặc bị nước cuốn trôi đến các vị trí khác làm xáo trộn các loài giữa các điểm với nhau, vì vậy sự chênh lệch giữa các điểm là không đáng kể. Mặt khác, vào mùa mưa môi trường nước sông thường xuyên thay đổi làm hạn chế khả năng phát triển của các loài thực vật thủy sinh là nguồn thức ăn của Giáp xác cỡ lớn vì vậy làm giảm sự phát triển của các loài Giáp xác cỡ lớn tại đây; ngoài ra, có thể do mùa mưa lượng nước sông lớn, tạo diện tích phân bố rộng nên các loài phân bố giãn ra và cũng có thể do dòng chảy mạnh gây khó khăn cho công tác thu mẫu.
Hình 3.4. Sự biến động thành phần loài Giáp xác cỡ lớn giữa hai mùa
3.3.1.4. Đánh giá tinh tương đồng về thành phần loài Giáp xác cỡ lớn tại các điểm thu mẫu
Phân tích mức độ tương đồng giữa các điểm thu mẫu dựa vào chỉ số tương đồng Bray –Curtis và xử lý số liệu trên phần mềm Primer 6 đã chỉ ra mức độ giống nhau về thành phần loài của Giáp xác cỡ lớn ở nước ngọt tại khu vực nghiên cứu. Kết quả tính toán chỉ số tương đồng Bray – Curtis tại các điểm nghiên cứu được thể hiện ở hình 3.5 và hình 3.6
Qua kết quả phân tích, ta nhận thấy giữa các điểm thu mẫu có tính tương đồng về thành phần loài cao, cao nhất đến 85,95% thuộc hai điểm thu mẫu M2 (thuộc xã Trà Đốc) và điểm M10 (xã Trà Giác); điểm có tính tương đồng thấp nhất là M4 (xã Trà Bui) với M6 (xã Trà Tân): 48,13%. Các điểm còn lại có tính tương đồng tương đối cao, giao động từ 48,17% – 82,79%.
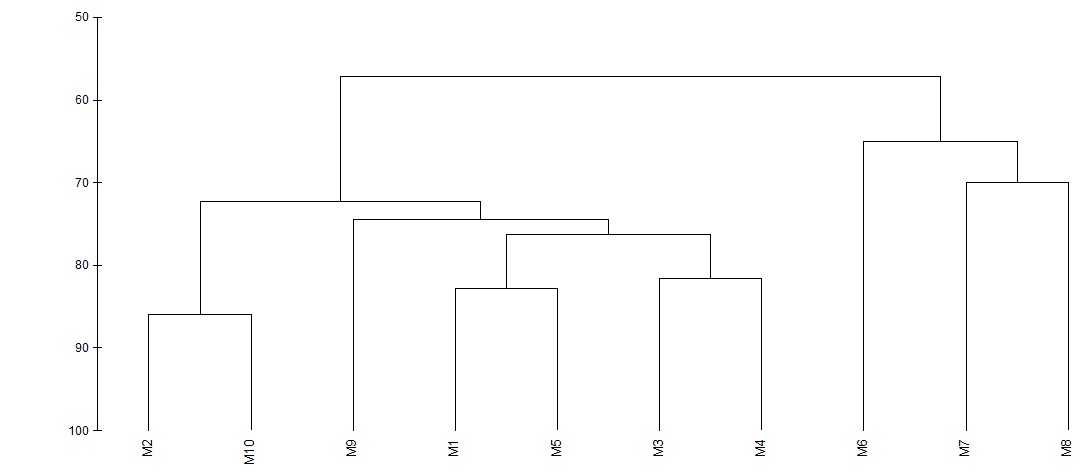
Hình 3.5. Sơ đồ Bray – Curtis thể hiện tính tương quan giữa các
Từ hình 3.5, ta có thể chia thành phần loài Giáp xác cỡ lớn tại các điểm thu mẫu ở sông Tranh thành 4 nhóm, cụ thể:
– Nhóm thứ nhất: Gồm các điểm thu mẫu M2 (xã Trà Đốc) và M10 (xã Trà Giác). Qua kết quả khảo sát thực địa và kiểm tra các chỉ số môi trường thì tại hai điểm này có sinh cảnh và các chỉ số môi trường tương đối giống nhau.
– Nhóm thứ hai: gồm 5 điểm thu mẫu M1 (xã Trà Đốc) và M5 (xã Trà Bui), M3, M4 (thuộc xã Trà Bui) và M9 (xã Trà Sơn). Nhóm này, gồm các điểm nằm ở khu vực thượng lưu và các điểm nhánh nằm ở cuối hạ lưu sông Tranh nên tại đây điều kiện ngoại cảnh và môi trường sống tương đối giống nhau do vậy tại đây có tính tương đồng về thành phần loài tương đối cao.
– Nhóm thứ ba: gồm 3 điểm M6, M7 (thuộc xã Trà Tân) và M8 (xã Trà Sơn). Tương đồng về thành phần loài tại các điểm này tương đối thấp hơn so với các điểm còn lại.
Không gian phân bố hai chiều MDS cũng đã thể hiện rõ tính tương đồng giữa các điểm thu mẫu với nhau.
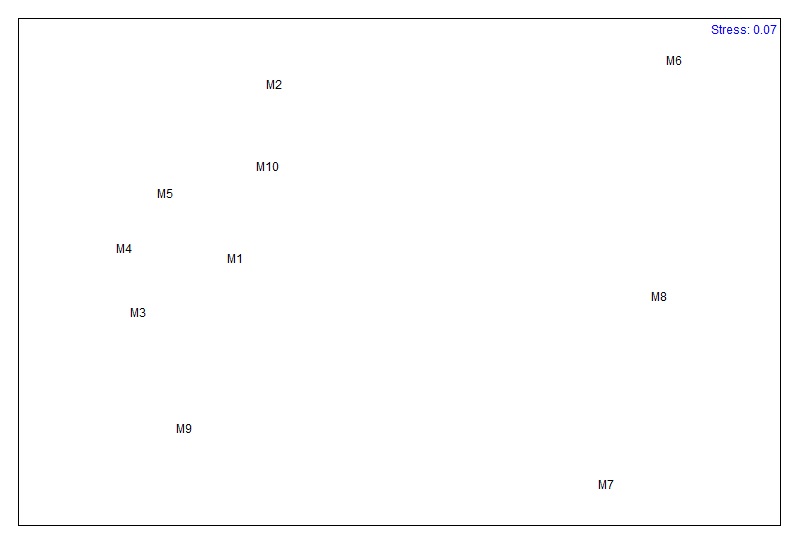 |
Hình 3.6. Không gian hai chiều MDS của Bray – Curtis giữa các điểm nghiên cứu
Ở đây, giá trị hàm stress = 0,07 chứng tỏ vị trí của các điểm thu mẫu trên không gian 2 chiều MDS rất phù hợp với hệ số tương đồng của chúng.
*Chỉ số tương đồng Bray – Curtis vào mùa khô
Kết quả tính toán chỉ số tương đồng Bray – Curtis giữa các điểm thu mẫu vào mùa khô được trình bày ở hình 3.7 và hình 3.8.
Dựa vào thể hiện ở hình 3.7 ta thấy rõ tính tương đồng giữa các điểm thu mẫu vào mùa khô tương đối cao. Trong đó, các điểm có chỉ số tương đồng cao nhất gồm: M3 với M4 (thuộc xã Trà Bui): 85,38%; M2 (thuộc xã Trà Đốc) và M10 (thuộc xã Trà Giác): 83,27%. Nhóm các điểm thu mẫu có chỉ số tương đồng thấp nhất gồm: M5 (thuộc xã Trà Bui) với M6 (thuộc xã Trà Tân):45,83%; M4 (thuộc xã Trà Bui) với M6 (thuộc xã Trà Tân): 46,96%
Hình 3.7. Sơ đồ Bray – Curtis thể hiện tính tương quan giữa các điểm
Từ kết quả phân tích, ta có thể chia thành phần loài tại các điểm thu mẫu vào mùa khô thành 4 nhóm như sau:
-Nhóm thứ nhất: Nhóm thứ hai: gồm 3 điểm M3, M4 và M9
– Nhóm thứ 2 gồm 2 điểm M2 và M10, do hai điểm này đều nằm ở cuối các nhánh của sông Tranh, có điều kiện sinh cảnh và môi trường sống giống nhau nên thành phần loài tại hai điểm này có tính tương đồng cao.
– Nhóm thứ ba: gồm 2 điểm M1 và M5
– Nhóm thứ tư: gồm 3 điểm M6, M7 và M8
Điều này được thể hiện tại hình 3.8 trong không gian hai chiều MDS của Bray – Curtis giữa các điểm nghiên cứu.
Hình 3.8. Không gian hai chiều MDS của Bray – Curtis giữa các điểm nghiên cứu vào mùa khô
Kết quả từ không gian hai chiều cho thấy vào mùa khô tính tương đồng bình quân giữa các điểm cao. Nhóm các điểm thu mẫu có tính tương đồng cao gồm: M2 với M10; M9, M3, M4 với M1 và M5. Nhóm các điểm thu mẫu có tính tương đồng thấp gồm: M6 với M7 và M8. Ở đây hoàm stress = 0,07.
*Chỉ số tương đồng Bray – Curtis vào mùa mưa
Kết quả phân tích chỉ số tương đồng Bray – Curtis vào mùa mưa được thể hiện tại hình 3.9 và hình 3.10.
Qua kết quả phân tích đã chỉ rõ vào mùa mưa, chỉ số tương đồng tại các điểm nghiên cứu có sự chênh lệch so với mùa khô, tuy nhiên sự chênh lệch này là không đáng kể. Một số điểm có chỉ số tương đồng cao hơn và mùa khô nhưng cũng có một số điểm chỉ số này lại thấp hơn. Các điểm có tính tương đồng cao nhất là điểm M2 (thuộc xã Trà Đốc) với M10 (thuộc xã Trà Giác) đến 91,85%; tiếp theo là điểm M1 (thuộc xã Trà Đốc) với điểm M5 (thuộc xã Trà Bui): 86,54%. Các điểm có chỉ số tương đồng thấp nhất là M3 (thuộc xã Trà Bui) với M6 (thuộc xã Trà Tân): 42,69%.
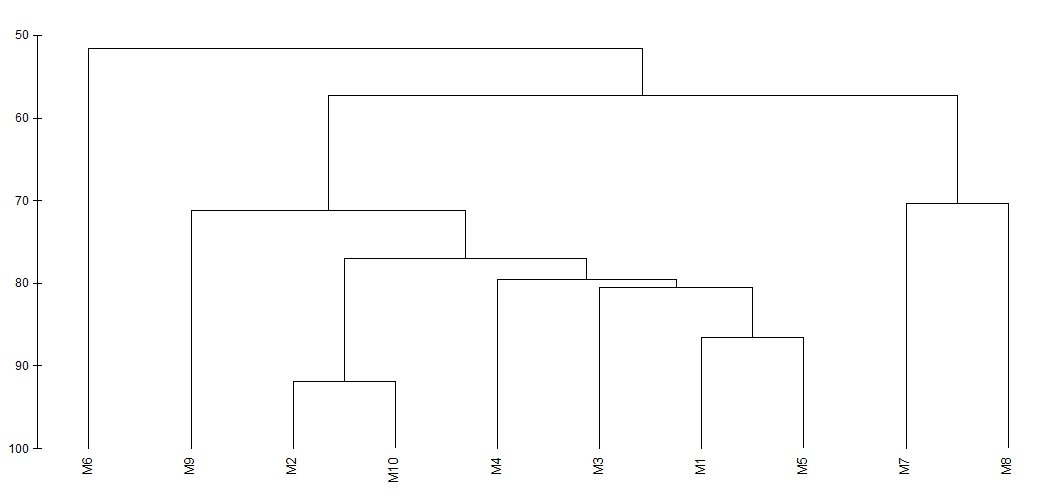
Hình 3.9. Sơ đồ Bray – Curtis thể hiện tính tương quan giữa các điểm thu mẫu vào mùa mưa
Từ kết quả trên ta có thể chia thành phần loài tại điểm thu mẫu thành 4 nhóm như sau:
– Nhóm thứ nhất: Gồm 2 điểm M2 và M10, đây là nhóm có chỉ số tương đồng cao nhất, vì đây là 2 điểm cuối 2 nhánh của sông Tranh nên môi trường sống và sinh cảnh ở đây có nhiều đặc điểm giống nhau.
– Nhóm thứ 2: Gồm 4 điểm M1, M3, M4, M5
– Nhóm thứ 3: Gồm 2 điểm M7 và M8, 2 điểm này nằm trong khu vực lòng hồ nên điều kiện sinh cảnh có nét tương đồng.
– Nhóm thứ 4: gồm 2 điểm M6 và M9
Kết quả tính chỉ số tương đồng được hiển thị trên màn hình không gian hai chiều MDS như sau:
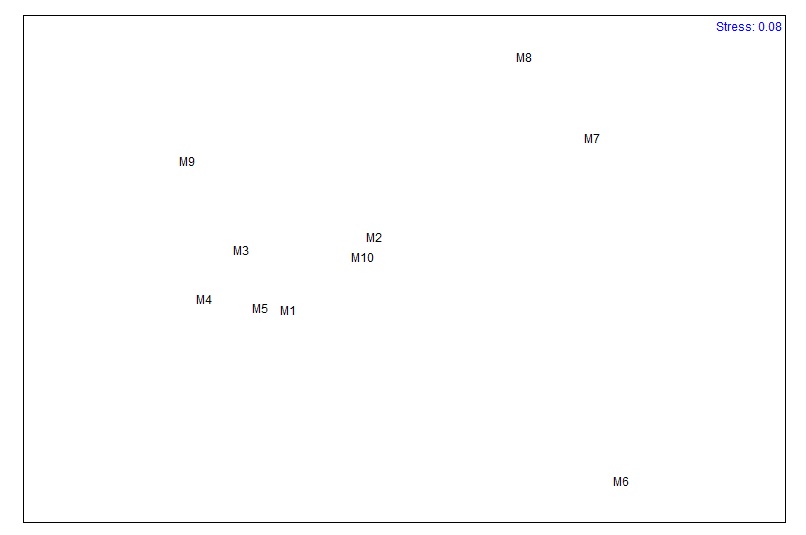 |
Hình 3.10. Không gian hai chiều MDS của Bray – Curtis giữa các điểm
Kết quả phân tích không gian hai chiều MDS ở hình 3.10 đã chỉ rõ vào mùa mưa tính tương đồng giữa các điểm có sự chênh lệch so với mùa khô, tuy nhiên sự chênh lệch này là không quá lớn. Hàm stress = 0,08 phù hợp với kết quả phân tích ở trên.
3.3.2. Biến động số lượng cá thể và chỉ số đa dạng
3.3.2.1. Biến động số lượng cá thể
Bảng 3.7. Số lượng cá thể các loài Giáp xác cỡ lớn tại các điểm thu
| STT | Điểm thu mẫu | Số lượng cá thể | Trung bình | |
| Mùa khô | Mùa mưa | |||
| 1 | M1 | 20 | 16 | 18 |
| 2 | M2 | 19 | 18 | 18,5 |
| 3 | M3 | 28 | 25 | 26,5 |
| 4 | M4 | 31 | 28 | 29,5 |
| 5 | M5 | 26 | 22 | 24 |
| 6 | M6 | 11 | 7 | 9 |
| 7 | M7 | 10 | 8 | 9 |
| 8 | M8 | 9 | 12 | 10,5 |
| 9 | M9 | 19 | 13 | 16 |
| 10 | M10 | 18 | 16 | 17 |
| Tổng | 191 | 165 | ||
Qua kết quả phân tích ta nhận thấy số lượng cá thể của các loài Giáp xác cỡ lớn tại sông Tranh có xu hướng tăng theo dần theo khu vực: lòng hồ, hạ lưu và thượng lưu. Sự gia tăng này không theo dòng chảy của sông từ dưới lên hay từ trên xuống mà lại bị chia cắt ở vùng giữa do ảnh hưởng của việc xây dựng thủy điện.
* Biến động số lượng cá thể Giáp xác cỡ lớn ở nước vào mùa khô
Qua kết quả nghiên cứu đã thể hiện rõ tại bảng 3.7, cụ thể: vào mùa khô, tổng số cá thể thu được tại 10 điểm thu mẫu là 191 cá thể, giao động từ 9 – 31 cá thể, trong đó cao nhất là điểm thu mẫu M4 (31 cá thể), điểm kế tiếp là điểm thu mẫu M3 (29 cá thể), vị trí tiếp theo điểm thu mẫu M5 (26 cá thể). Các điểm còn lại theo thứ tự giảm dần và thấp nhất là tại điểm thu mẫu M8 (với 9 cá thể).
Hình 3.11. Sự biến động số lượng cá thể Giáp xác cỡ lớn vào mùa khô
Từ hình 3.11 ta thấy, sự biến động số lượng cá thể của các loài Giáp xác cỡ lớn vào mùa khô tại các điểm thu mẫu tương đối lớn. Sự biến động số lượng cá thể lớn nhất là giữa điểm thu mẫu M4 với các điểm thu mẫu M7 và M8.
Nhìn chung, vào mùa khô số lượng cá thể của Giáp xác cỡ lớn thu được tại các điểm thu mẫu có sự biến động lớn.
*Biến động số lượng cá thể Giáp xác cỡ lớn ở nước vào mùa mưa
Kết quả phân tích biến động số lượng có thể vào mùa mưa cho thấy: tổng số cá thể thu được tại 10 điểm thu mẫu là 165 cá thể, số lượng cá thể bình quân vào mùa mưa là 16,5 cá thể, giao động từ 7 – 28 cá thể, trong đó cao nhất là điểm thu mẫu M4 (với 28 cá thể) và thấp nhất là tại điểm thu mẫu M6 (với 7 cá thể)
Hình 3.12. Sự biến động số lượng cá thể Giáp xác cỡ lớn vào mùa mưa
Qua hình 3.12 ta thấy, vào mùa mưa vẫn có sự biến động về lớn số lượng cá thể tại các điểm thu mẫu, cụ thể như sau:
Vào mùa mưa, sự biến động số lượng cá thể lớn nhất là giữa điểm thu mẫu M4 với điểm các điểm thu mẫu M6 và M8.
Nhìn chung, số lượng cá thể của Giáp xác cỡ lớn tại các điểm thu mẫu trong khu vực nghiên cứu vào mùa mưa vẫn theo đúng quy luật so với mùa khô, tuy nhiên thành phần và số lượng các loài cũng như số cá thể thu được trong mỗi lần lấy mẫu giảm đi đáng kể so với mùa khô.
*Biến động số lượng cá thể Giáp xác cỡ lớn ở nước giữa hai mùa
Để làm rõ sự khác nhau về sự biến động số lượng cá thể của Giáp xác cỡ lớn giữa hai mùa chúng tôi tiến hành phân tích, so sánh và kết quả được thể hiện tại hình 3.13.
Hình 3.13. Biến động số lượng cá thể Giáp xác cỡ lớn
tại các điểm thu mẫu giữa hai mùa
Vào mùa khô sự biến động số lượng cá thể tại các điểm thu mẫu với nhau cao hơn vào mùa mưa, điều này là do: vào mùa khô, nước sông chảy nhỏ tạo nên sự khác biệt đáng kể giữa các điểm thu mẫu về môi trường sống, những khu nào có điều kiện sống thuận lợi thì các loài Giáp xác cỡ lớn sẽ phát triển tốt làm tăng số lượng cá thể, những nơi có điều kiện môi trường không thuận lợi thì khả năng phát triển của các loài giáp xác cỡ lớn tại đây giảm, có một số loài còn di cư đến nơi khác làm giảm số lượng cá thể xuống, đây là nguyên nhân dẫn đến sự khác biệt lớn về số lượng cá thể giữa các điểm thu mẫu với nhau vào mùa khô; vào mùa mưa, dòng nước sông lớn gây xáo trộn môi trường sống và thành phần loài tại các điểm trong khu vực nghiên cứu cho nên tại các điểm thu mẫu có sự đồng đều hơn về môi trường sống và số lượng cá thể.
3.3.2.2. Đánh giá hiện trạng ĐDSH của các loài Giáp xác cỡ lớn trong khu vực nghiên cứu
Kết quả tính toán chỉ số đa dạng sinh học Simpson của các loài Giáp xác cỡ lớn trong khu vực nghiên cứu được thể hiện tại bảng 3.8, cụ thể:
Bảng 3.8: Chỉ số Simpson H’ của Giáp xác cỡ lớn tại các điểm nghiên cứu
| STT | Điểm thu mẫu | Chỉ số Simpson H’ | ||
| Mùa khô | Mùa mưa | Cả năm | ||
| 1 | M1 | 2,65 | 2,6 | 2,68 |
| 2 | M2 | 2,48 | 2,58 | 2,58 |
| 3 | M3 | 2,86 | 2,69 | 2,86 |
| 4 | M4 | 2,9 | 2,71 | 2,93 |
| 5 | M5 | 2,79 | 2,78 | 2,83 |
| 6 | M6 | 2,02 | 1,75 | 2,13 |
| 7 | M7 | 2,16 | 1,91 | 2,25 |
| 8 | M8 | 2,04 | 2,02 | 2,19 |
| 9 | M9 | 2,62 | 2,54 | 2,68 |
| 10 | M10 | 2,74 | 2,6 | 2,79 |
| Trung bình | 2,52 | 2,42 | 2,59 | |
Qua kết quả tính toán, ta có chỉ số đa dạng H’ trung bình của các điêt hu mẫu là 2,59 tương ứng với mức độ đa dạng sinh học ở khu vực này là tương đối tốt. Điểm có chỉ số H’ thấp nhất là điểm M6 (Trà Tân): 2,13; điểm có chỉ số H’ cao nhất là điểm M5 (Trà Bui): 2,93; hai điểm thu mẫu M1 (Trà Đốc) và M9 (Trà Sơn) có chỉ số H’ bằng nhau: 2,58.
Hình 3.14. Chỉ số đa dạng sinh học Simpson H’ của giáp xác cỡ lớn tại các điểm nghiên cứu
Nhìn chung, chỉ số H’ tại các điểm thu mẫu trong khu vực nghiên cứu đều ở mức tương đối tốt, mặc dù có sự chênh lệch nhau nhưng sự chênh lệch này là không đáng kể. Từ hình 3.14 ta có thể chia mức độ đa dạng sinh học của Giáp xác cỡ lớn ở sông tranh thành 2 nhóm đó là nhóm có chỉ số H’>2,5 và nhóm có chỉ số H’<2,5.
– Đối với nhóm có chỉ số H’<2,5 gồm các điểm M6, M7, M8, nguyên nhân là do các điểm thu mẫu này nằm trong lòng hồ thủy điện sông Tranh, chịu sự tác động mạnh mẽ của con người trong việc chắn dòng xây đập nhân tạo làm thay đổi dòng chảy, bên cạnh đó việc nuôi cá lồng bè trong khu vực lòng hồ ngày càng phát triển cũng đã ảnh hưởng lớn tới chất lượng môi trường nước ở nơi đây. Chính những điều này đã làm ảnh hưởng đến đời sống của các loài Giáp xác cỡ lớn.
– Đối với nhóm có chỉ số H’>2,5 gồm các điểm thu mẫu M1, M2, M3, M4, M5, M9 và M10, nguyên nhân là do tại các điểm thu mẫu này có điều kiện thuận lợi hơn cho Giáp xác sinh sống và phát triển như có suối, khe từ nhiều nơi đổ về, hai bên dòng sông có độ che phủ cao đặc biệt là các điểm ở thượng lưu sông Tranh, một số điểm là nơi giao thoa và tiếp giáp với các sông khác chính vì điều kiện môi trường tốt hơn và ít chịu sự tác động của con người hơn nên mức độ đa dạng sinh học ở đây cao hơn.
Theo mùa thì chỉ số H’ trung bình của Giáp xác cỡ lớn ở sông Tranh vào mùa khô mùa mưa. Kết quả phân tích chỉ số H’ của Giáp xác tại khu vực nghiên cứu được thể hiện cụ thể tại hình 3.15.
– Vào mùa khô chỉ số H’ trung bình là 2,52; cao nhất là 2,9 tại điểm M4 (Trà Bui) và thấp nhất là 2,02 tại điểm M6 (Trà Tân).
– Vào mùa mưa, chỉ số H’ trung bình là 2,42; cao nhất là 2,78 tại điểm M5 (Trà Bui) và thấp nhất là 1,75 tại điểm M6 (Trà Tân)
Từ kết quả trên có thể nhận thấy, sự chênh lệch về mức độ đa dạng sinh học giữa hai mùa là không lớn. Về mùa khô, chỉ số đa dạng sinh học của các loài Giáp xác cỡ lớn ở sông Tranh cao và đồng đều hơn vào mùa mưa. Cả 2 mùa đều ở mức đa dạng tương đối tốt.
Hình 3.15. Chỉ số đa dạng H’ của giáp xác cỡ lớn tại các điểm nghiên cứu giữa hai mùa
3.4. PHÂN TÍCH MỐI TƯƠNG QUAN GIỮA QUẦN XÃ SINH VẬT VỚI CÁC YẾU TỐ MÔI TRƯỜNG (BIO-ENV)
3.4.1. Hệ số BIO –ENV vào mùa khô
Kết quả phân tích BIO-ENV vào mùa khô cho thấy, tổ hợp 3 yếu tố Độ đục, DO và TDS có hệ số tương quan cao nhất đối với Giáp xác cỡ lớn ở nước vào mùa khô, có hệ số tương quan là 0,596. Kết quả này cho thấy cùng với độ đục, DO và TDS giữ vai trò quan trọng đối với các loài Giáp xác cỡ lớn vào mùa khô. Tiếp theo là nhóm các yếu tố Độ dẫn, Độ đục và DO cũng có vai trò rất quan trọng đối với Giáp xác cỡ lớn ở nước vào mùa khô. Các nhóm khác giao động từ 3-5 yếu tố nhưng đều có hệ số tương quan nhỏ hơn 0,596.
Bảng 3.9. Hệ số tương quan BIO-ENV
giữa giáp xác cỡ lớn ở nước với các yếu tố môi trường vào mùa khô
| k | Yếu tố | Hệ số tương quan (Rho) |
| 3 | Độ đục, DO, TDS | 0,596 |
| 3 | Độ dẫn, Độ đục, DO | 0,594 |
| 4 | Độ dẫn, Độ đục, DO, TDS | 0,584 |
| 5 | pH, Độ dẫn, Độ đục, DO, TDS | 0,581 |
| 5 | Nhiệt độ, Độ dẫn, Độ đục, DO, TDS | 0,574 |
| 4 | Nhiệt độ, Độ đục, DO, TDS | 0,574 |
| 4 | Nhiệt độ, Độ dẫn, Độ đục, DO | 0,574 |
| 4 | pH, Độ đục, DO, TDS | 0,569 |
| 4 | pH, Độ dẫn, Độ đục, DO | 0,569 |
| 4 | Nhiệt độ, độ dẫn, độ đục, TDS | 0,568 |
K: số lượng các yếu tố môi trường tại cùng thời điểm
3.4.2. Hệ số BIO –ENV vào mùa mưa
Kết quả phân tích BIO-ENV vào mùa mưa cho thấy, tổ hợp 3 yếu tố Độ đục, DO và TDS cũng có hệ số tương quan cao nhất đối với Giáp xác cỡ lớn ở nước vào mùa mưa, có hệ số tương quan là 0,557. Kết quả này cho thấy cùng với độ đục, DO và TDS giữ vai trò quan trọng đối với các loài Giáp xác cỡ lớn vào mùa mưa. Tiếp theo là nhóm các yếu tố độ dẫn, DO, TDS và NH4 cũng có vai trò quan trọng đối với Giáp xác cỡ lớn ở nước vào mùa mưa. Các nhóm khác giao động từ 3-5 yếu tố, có hệ số tương quan đều nhỏ hơn 0,557.
Bảng 3.10. Hệ số tương quan BIO-ENV
giữa giáp xác với các yếu tố môi trường vào mùa mưa
| k | Yếu tố | Hệ số tương quan (Rho) |
| 3 | Độ đục, DO, TDS | 0,557 |
| 4 | Độ dẫn, DO, TDS, NH4 | 0,554 |
| 3 | Độ dẫn, độ đục, DO | 0,552 |
| 3 | pH, Độ dẫn, DO | 0,552 |
| 4 | Nhiệt độ, pH, độ dẫn, DO | 0,551 |
| 4 | Nhiệt độ, độ dẫn, DO, TDS | 0,547 |
| 3 | pH, DO, TDS | 0,547 |
| 5 | pH, độ dẫn, DO, TDS, NH4+ | 0,545 |
| 5 | pH, độ dẫn, DO, NH4+, nhiệt độ | 0,542 |
| 3 | Độ dẫn, độ đục, TDS | 0,540 |
K: số lượng các yếu tố môi trường tại cùng thời điểm
3.5. NHỮNG TÁC ĐỘNG TIÊU CỰC ẢNH HƯỞNG ĐẾN MÔI TRƯỜNG SỐNG ĐẾN SỐ LƯỢNG VÀ THÀNH PHẦN LOÀI CỦA GIÁP XÁC CỠ LỚN Ở NƯỚC TẠI SÔNG TRANH, HUYỆN BẮC TRÀ MY, TỈNH QUẢNG NAM
3.5.1. Khai thác quá mức và sử dụng các biện pháp khai thác không hợp lý của người dân
Qua quá trình đi khảo sát thực địa, thu mẫu và phỏng vấn người dân khai thác, đánh bắt thủy sản trên sông Tranh và những người dân sống hai bên sông thì hơn 90% người dân cho biết cách đây 5 năm lượng tôm, cua trên sông Tranh nhiều hơn, sản lượng đánh bắt được của người dân lớn, nhưng hiện nay sản lượng tôm, cua bắt được là rất ít, mức độ ĐDSH của Giáp xác cỡ lớn tại đây là rất thấp. Nguyên nhân chính là do:
Nếu như trước đây người dân khai thác bằng các loại lưới bình thường, các phương tiện khai thác đơn giản và theo chu kỳ thì trong những năm gần đây, với các loại hóa chất có sẵn với giá thành rất rẻ, chủ yếu là các loại thuốc trừ sâu như: Fastac 5EC,… chỉ cần hòa một lượng nhỏ và đổ xuống nơi đầu nguồn nước thì trong khoảng 2 – 3 km trên sông tôm, cua sẽ chết với một số lượng tương đối lớn, người dân sẽ thu được từ 5 – 6kg tôm, cua trong một lần thả thuốc.
Bên cạnh đó, việc khai thác bằng các biện pháp chích điện, chài quét cũng đã bắt hết các loài thủy sản hoặc làm chúng bị chết. Các loài tôm, cua không kể lớn nhỏ đều bị khai thác hoặc tiêu diệt gần như triệt để đã làm giảm số lượng của các loài Giáp xác ở khu vực này đồng thời chính điều này cũng là một trong những nguyên nhân quan trọng có khả năng làm biến mất một số loài tại đây.
Đây chính là nguyên nhân làm ảnh hưởng tiêu cực đến độ ĐDSH của Giáp xác cỡ lớn trên sông Tranh
3.5.2. Chất thải sinh hoạt và sản xuất của người dân
Các loại chất thải sinh hoạt của người dân là một trong những nguyên nhân gây ô nhiễm môi trường, ảnh hưởng đến môi trường sống của thủy sinh vật, làm giảm mức độ ĐDSH của Giáp xác cỡ lớn tại đây. Các hộ gia đình sống ở các vùng lân cận gom rác thải sau đó chở ra đổ suống sông Tranh khiến cho sông Tranh ngày càng bị ô nhiễm.
Các hoạt động từ sản xuất nông nghiệp và chăn nuôi cũng là một trong những nguyên nhân làm cho sông Tranh bị nhiễm. Nguyên nhân này là do trong quá trình sản xuất nông nghiệp người dân dùng thuốc diệt cỏ, hóa chất bảo vệ thực vật và các loại hóa chất khác, các loại hóa chất này sẽ theo dòng nước chảy ra sông làm cho nước sông bị ô nhiễm. Qua kết quả phỏng vấn các hộ dân ở đây thì trên 95% các hộ sản xuất nông nghiệp đều sử dụng các loại hóa chất bảo vệ thực vật trong quá trình sản xuất.
Hoặc trong quá trình chăn nuôi, xác các loài gia súc, gia cầm chết do dịch bệnh bị một số người dân vứt xuống sông làm cho nước sông bị ô nhiễm.
3.5.3. Công tác quản lý, bảo vệ rừng còn nhiều bất cập
Trong những năm gần đây tình hình khai thác rừng trái phép ở huyện Bắc Trà My có xu hướng ngày càng tăng, đặc biệt là khu vực rừng đầu nguồn. Theo tình hình khảo sát thực địa thì các khu rừng đầu nguồn và lân cận của sông Tranh đã bị người dân khai thác, chặt phá, chuyển đổi thành đất nông, lâm nghiệp. Vì vậy, làm giảm độ che phủ của rừng, giảm mực nước ngầm, làm cho sông Tranh thiếu nước về mùa khô, lũ quét mạnh vào mùa mưa ảnh hưởng đến đời sống của thủy sinh vật trên sông.
3.5.4. Khai thác cát của người dân trên sông Tranh
Hiện nay, khu vực bãi cát sỏi giáp ranh giữa nga ba sông Trường và sông Tranh được khai thác mạnh, đây được coi là nguồn cung cấp cát sỏi cho tất cả các hoạt động xây dựng của huyện Bắc Trà My.. Các hoạt động này đã làm cho mất chỗ ở và môi trường sống của thủy sinh vật bị ảnh hưởng, làm giảm ĐDSH của các loài Giáp xác cỡ lớn tại đây.
3.5.5. Tác động của biến đổi khí hậu
Biến đổi khí hậu mà trước hết là sự nóng lên toàn cầu và mực nước biển dâng, là một trong những thách thức lớn đối với nhân loại trong thế kỷ XXI. Theo dự báo của Ủy ban liên Chính phủ về biến đổi khí hậu, Việt Nam sẽ là một trong 5 nước chịu ảnh hưởng nặng nề nhất của hiện tượng biến đổi khí hậu toàn cầu. Theo kịch bản của Bộ Tài nguyên và Môi trường công bố tháng 6/2009 cho thấy vào cuối thế kỷ XXI, nhiệt độ trung bình năm ở nước ta tăng 2,30C; tổng lượng mưa năm và lượng mưa vào mùa mưa tăng trong khi lượng mưa vào mùa khô lại giảm [46].
Theo Trung tâm dự báo khí tượng thủy văn tỉnh Quảng Nam, hiện tượng thời thiết bất thường đang xảy ra ở đây: mùa khô đang kéo dài và khô nóng gay gắt, mùa mưa lượng mưa lớn và thay đổi thất thường. Khi biến đổi khí hậu xảy ra thì nguy cơ làm cho nhiều loài Giáp xác cỡ lớn tại đây không thích nghi được, làm suy giảm số lượng loài và cá thể dẫn đến làm giảm ĐDSH. Biến đổi khí hậu còn làm ảnh hưởng rất lớn đến đời sống thủy sinh vật tại đây. Khi lượng mưa vào mùa mưa tăng sẽ xảy ra hiện tượng lũ quét, gây xói lở cục bộ làm mất nơi cư trú của các loài Giáp xác cỡ lớn tại đây. Mùa khô kéo dài và nhiệt độ tăng sẽ làm cho nguồn nước tại đây bị cạn kiệt làm mất môi trường sống của các loài Giáp xác cỡ lớn tại đây.
3.5.6. Ảnh hưởng của việc xây dựng thủy điện sông Tranh
Qua kết quả đi thực địa, thu mẫu tại vùng nghiên cứu, phỏng vấn ngư dân trong vùng chúng tôi xác định những tác động của thủy điện Sông Tranh 2 ảnh hưởng đến nguồn lợi thủy sản nói chung và giáp xác cỡ lớn nói riêng thông qua việc thay đổi môi trường sống thủy sinh sau đây:
Đập thủy điện Sông Tranh đã phá vỡ kết nối chiều dọc sông, đã tạo nên rào cản di cư của các loài thủy sinh vật dọc theo dòng sông làm hạn chế đến việc kiếm thức ăn của các loài hay cản trở việc di cư cho sinh sản.
Việc xây dựng đập chứa đã làm cho dòng chảy ở thượng nguồn sông yếu đi do giảm độ cao của thác ghềnh trong khi đó diện tích mặt hồ tăng làm giảm chiều dài của sông từ thượng nguồn đổ về hạ lưu. Điều này đã tạo ra chế độ dòng chảy mới hoàn toàn khác biệt ở sông Tranh đó là chia thành 2 chế độ ở thượng lưu và hạ lưu mà ranh giới của nó là đập chứa. Chính vì vậy mà dòng chạy ở các đoạn sông thường không ổn định, không có quy luật rõ ràng dẫn đến hiện tượng phá hủy các khu vực ven bờ cũng như nơi ở và sinh sản của của các loài giáp xác, đồng thời cũng gây ảnh hưởng tới khả năng tìm kiếm thức ăn của chúng.
Hệ sinh thái sông với nhiều thác ghềnh, dòng chảy mạnh, độ sâu khác nhau ở từng lưu vực biến thành hệ sinh thái hồ, nước tĩnh cũng đã ảnh hưởng tới những loài giáp xác cỡ lớn thường sống ở các khu vực có nhiều khe đá, thác ghềnh phù hợp với với môi trường nước động.
Việc xây dựng hồ chứa tạo điều kiện thuận lợi cho người dân phát triển nuôi trồng thủy sản (nuôi cá lồng bè) nhưng chính điều này cũng đã gây ảnh hưởng tới môi trường nước ở vùng lòng hồ, thức ăn chăn nuôi cùng với các loại hóa chất xử lý đã gây ô nhiễm môi trường nước của sông ở khu vực này. Đồng thời, thảm thực vật từ thượng lưu theo dòng chảy đổ về và ngập sâu trong lòng hồ xảy ra quá trình phân hủy chất hữu cơ, gây nên hiện tượng phú dưỡng đã tác động xấu tới các loài giáp xác sống ở khu vực lòng hồ, không những vậy nó cũng gây ảnh hưởng tới chất lượng nước ở vùng hạ lưu dẫn đến ảnh hưởng tới các loài sống ở vùng hạ lưu.
Việc tích nước cũng làm cho mực nước trong hồ trở nên sâu hơn, xóa bỏ các thảm thực vật gây khó khăn trong việc tìm kiếm thức ăn của các loài sống ở đây.
Hồ chứa được hình thành đã làm thay đổi dòng chảy và gây xói lở ở vùng hạ lưu, nguồn cung cấp chất dinh dưỡng ở phía hạ lưu cũng bị thay đổi. Nguồn dinh dưỡng được tập trung về hồ chứa, dòng chảy từ thượng lưu về hạ lưu giảm đột ngột do bị đập chắn nên hơn 90% phù sa tập trung tại hồ. Điều này đã làm giảm sút nguồn cấp cấp dinh dưỡng cho hạ lưu. Dòng chảy biến đổi, suy giảm chất dinh dưỡng hay nguồn nước ô nhiễm có thể chảy xuống phía hạ lưu gây tác động tới toàn hệ thống sông.
Khi hồ thủy điện tích nước, tải trọng nước hồ làm tăng áp suất nước lỗ rỗng trong các đới dập vỡ và do đó làm giảm độ bền cắt của các đất đá trong đới. Khi đứt gãy hoạt động đã ở trong trạng thái ứng suất tới hạn, việc giảm độ bền cắt của đất đá trong đới đứt gẫy dẫn tới việc xảy ra dịch trượt làm cho động đất phát sinh. Nếu động đất xảy ra thường xuyên và với cường độ lớn sẽ gây ra những hậu quả nghiêm trọng đe dọa môi trường sống của sinh vật và con người.
- Động đất có thể làm sập các ống cống, đường hầm gây ô nhiễm môi trường nước và cũng hạn chế việc cung cấp nước ngọt tại khu vực này.
- Động đất làm tăng nguy cơ sạc lở đất, nhất là ở các vùng đồi núi. Điều này gây ra sự tàn phá nghiêm trọng đối với hệ sinh thái, gây tổn hại đối với sinh mạng của sinh vật. Sạc lở đất sẽ gây nên hiện tượng chắn dòng, vùi lấp lòng sông khiến cho các loài giáp xác bị mất chỗ ở và có khả năng sẽ tiêu diệt một số loài. Ngoài sạc lở, động đất còn gây nên hiện tượng sụt lún làm mất môi trường sống của các loài sinh vật đặc biệt là thảm thực vật ven sông, gián tiếp ảnh hưởng tới nguồn thức ăn của giáp xác.
Không những thế, việc xây dựng thủy điện đã làm thay đổi địa chấn của khu vực này
3.6. ĐỀ XUẤT CÁC ĐỊNH HƯỚNG BẢO TỒN VÀ PHÁT TRIỂN ĐDSH GIÁP XÁC CỠ LỚN Ở NƯỚC TẠI SÔNG TRANH
3.6.1. Tuyên truyền, giáo dục bảo vệ rừng, bảo vệ môi trường, thực hiện các biện pháp ứng phó biến đổi khí hậu
Phổ biến các kiến thức vệ bảo vệ rừng, bảo vệ môi trường và giáo dục ý thức bảo vệ môi trường cho người dân sinh sống hai bên sông Tranh và khu vực lân cận. Cụ thể như sau:
– Tổ chức tuyên truyền các luật, văn bản luật trên các lĩnh vực về bảo vệ rừng, môi trường đến với nhân dân: Luật bảo vệ rừng, luật bảo vệ Môi trường, luật đa dạng sinh học,… bằng nhiều hình thức khác nhau: tọa đàm, mạn đàm, truyên truyền bằng hình ảnh trực quan sinh động, sân khấu hóa,…
– Tổ chức các hội thi, hội diễn văn nghệ về chủ đề bảo vệ rừng, bảo vệ môi trường trong nhân dân.
– Xây dựng đội ngũ tuyên truyền viên và tổ chức tập huấn các kỹ năng tuyên truyền cũng như các kiến thức chuyên môn về công tác quản lý bảo vệ rừng, môi trường cũng như các biện pháp ứng phó với biến đổi khí hậu.
– Bảo vệ và kiểm soát chặt chẽ các nguồn nước thải thải ra sông , nghiêm cấm người dân bỏ các loại chất thải và xác các loài động vật nuôi xuống sông.
– Thực hiện và xử lý nghiêm trên lĩnh vực bảo vệ rừng, môi trường đối với các đối tượng có hành vi vi phạm theo đúng quy định của pháp luật.
3.6.2. Truyên truyền, giáo dục cho người dân về bảo vệ ĐDSH và thực hiện các biện pháp bảo vệ ĐDSH
– Xây dựng các chương trình tuyên truyền, đặt các pano trong khu vực để truyền tải thông tin đến với mọi người dân nhằm giúp người dân biết được vai trò quan trọng của công tác bảo vệ ĐDSH.
– Hạn chế hoặc có biện pháp phù hợp trong việc khai thác cát trên sông Tranh. Tránh tình trạng khai thác tràn lan, không theo quy hoạch. Đồng thời, xử lý nghiêm các hành vi khai thác cát trộm.
– Cấm các hành vi khai thác trái phép khoáng sản ở vùng thượng nguồn sông Tranh để bảo vệ rừng đầu nguồn.
– Có các quy định về việc khai thác, đánh bắt thủy sản trên sông cho phù hợp để nhằm bảo tồn ĐDSH nguồn lợi Giáp xác cỡ lớn tại đây.
3.6.3. Nâng cao hiệu quả công tác quản lý, bảo vệ rừng, bảo vệ ĐDSH
– Thực hiện chính sách chi trả dịch vụ môi trường rừng theo quy định tại Nghị định 99/2010/NĐ-CP ngày 24/9/2010 của Chính phủ, qua đó góp phần bảo đảm kinh tế, bảo đảm trồng rừng vả quản lý rừng bền vững.
– Nghiên cấm các biện pháp đánh bắt thủy sản trên sông mang tính hủy diệt như dùng thuốc, chích điện,…. Có các biện pháp xử phạt nghiêm minh nếu ai vi phạm.
– Thực hiện kế hoạch theo dõi, giám sát quá trình phục hồi của Giáp xác cỡ lớn ở nước tại đây.
– Đẩy mạnh công tác trồng và bảo vệ rừng: Cần có các dự án trồng rừng vừa tạo công ăn việc làm cho người dân vừa có tác dụng phủ xanh đất trống đồi trọc; Nên có những chính sách hỗ trợ người dân về mặt tài chính để người dân tham gia khoanh nuôi và bảo vệ rừng.
– Tập trung xây dựng các cơ chế hỗ trợ, phát triển kinh tế cho người dân nhất là người dân tộc thiểu số: xây dựng các mô hình về trồng trọt, chăn nuôi, phát triển kinh tế vườn gắn với tình hình thực tế của địa phương.
– Hỗ trợ và phát triển mô hình nuôi cá lồng bè trên đập thủy điện sông Tranh. Đồng thời, nghiên cứu để thí điểm nuôi trồng các loại tôm nước ngọt, tôm sông trong môi trường ao hồ.
1. Kết quả phân tích mẫu vật thu được tại sông Tranh, huyện Bắc Trà My, tỉnh Quảng Nam đã xác định được 21 loài, thuộc 6 giống và 4 họ của Giáp xác cỡ lớn. Trong đó, họ Palaemonidae thu được nhiều nhất với 12 loài (chiếm 57,14%), tiếp theo là họ Atyidae thu được 5 loài (chiếm 23,81%), họ Parathelphusidae thu được 3 loài (chiếm 14,29%), cuối cùng là họ Potamidae chỉ thu được 1 loài (chiếm 4,76%).
2. Số lượng loài thu được trong khu vực nghiên cứu khác nhau khá rõ ràng giữa các điểm thu mẫu và giữa hai mùa. Các điểm có số lượng loài cao tập trung chủ yếu ở những nơi ít bị tác động của con người. Các điểm có số lượng loài thấp thuộc khu vực bị tác động mạnh do hoạt động của con người. Số lượng loài thu được mùa khô cao hơn mùa mưa. Sự biến động về thành phần loài giữa các điểm thu mẫu với nhau mùa khô cao hơn mùa mưa. Tại các điểm thu mẫu số lượng loài của họ Palaemonidae luôn chiếm ưu thế. Tính tương đồng giữa các điểm nghiên cứu rất cao và có sự biến đổi theo mùa.
3. Số lượng cá thể trung bình cho mỗi điểm thu mẫu là 17,8 cá thể, cao nhất tại xã Trà Bui (M4): 29,5 cá thể, thấp nhất tại xã Trà Tân (M6, M7): 9 cá thể. Số lượng cá thể bình quân vào mùa khô là 19,1 cá thể, giao động từ 9 – 31 cá thể, số lượng cá thể bình quân vào mùa mưa là 16,5 cá thể, giao động từ 7- 28 cá thể. Họ Palaemonidae có số lượng cá thể cao nhất vào cả hai mùa. Hiện trạng ĐDSH của Giáp xác cỡ lớn tại sông Tranh đều ở mức tốt. Chỉ số đa dạng H’ trung bình là 2,59, điểm có chỉ số H’ thấp nhất là tại xã Trà Tân (M6): 2,13, điểm có chỉ số H’ cao nhất tại xã Trà Bui (M5): 2,93. Vào mùa khô chỉ số H’ trung bình là 2,52 cao hơn so với mùa mưa với chỉ số H’ trung bình là 2,42.
4. Kết quả phân tích BIO-ENV cho thấy, nhóm các yếu tố môi trường có hệ số tương quan cao nhất đến Giáp xác cỡ lớn tại khu vực nghiên cứu là tổ hợp 3 yếu tố độ đục, DO và TDS. Hệ số tương quan cao nhất đối với Giáp xác cỡ lớn vào mùa khô là 0,596. Hệ số tương quan cao nhất đối với Giáp xác cỡ lớn vào mùa mưa là 0,557.
2. Kiến nghị
1. Do thời gian còn hạn hẹp nên nghiên cứu mới chỉ điều tra về thành phần loài và đặc điểm của quần xã Giáp xác cỡ lớn ở một số điểm thuộc sông Tranh. Do vậy, cần mở rộng phạm vi nghiên cứu để có được số liệu hoàn chỉnh hơn về ĐDSH của Giáp xác cỡ lớn tại sông Tranh, huyện Bắc Trà My, tỉnh Quảng Nam.
2. Trên cơ sở kết quả nghiên cứu của đề tài, để bảo tồn và phát triển bền vững ĐDSH các loài Giáp xác cỡ lớn ở nước tại sông Tranh cần:
– Có chương trình và kế hoạch trước mắt và lâu dài, có nguồn kinh phí cần thiết cho công tác bảo tồn và phát triển ĐDSH, bảo vệ tài nguyên môi trường của sông Tranh.
– Đẩy mạnh công tác nghiên cứu khoa học, định kỳ kiểm tra, giám sát ĐDSH để có biện pháp bảo tồn ĐDSH tại đây có hiệu quả.
– Có những chính sách cụ thể trong công tác bảo vệ môi trường, bảo vệ rừng đầu nguồn, bảo vệ nguồn lợi thuỷ sản trên sông, tránh dùng các biện pháp đánh bắt thuỷ sản trên sông mang tính huỷ diệt.
E:\DỮ LIỆU COP CỦA CHỊ YẾN\DAI HOC DA NANG\LUAN VAN KY THUAT\SINH THAI HOC\PHAM XUAN HUONG


